

ДНК, матричные синтезы и регуляция экспрессии генов.
Содержание урока
- ДНК как носитель информации
- Репликация: полуконсервативность и точность
- Генетический код
- Транскрипция у прокариот и эукариот
- Процессинг РНК у эукариот
- тРНК, аминоацил-тРНК-синтетазы и рибосома
- Трансляция: инициация, элонгация, терминация
- Центральная догма и исключения
- Организация генома прокариот и эукариот
- Регуляция экспрессии и лактозный оперон
- Регуляция генов у эукариот
- Мутации, репарация и последствия для белка
- Методы чтения и анализа наследственной информации
- Единый алгоритм матричных синтезов
- Углубление: матрица, направление и комплементарность
01. ДНК как носитель информации
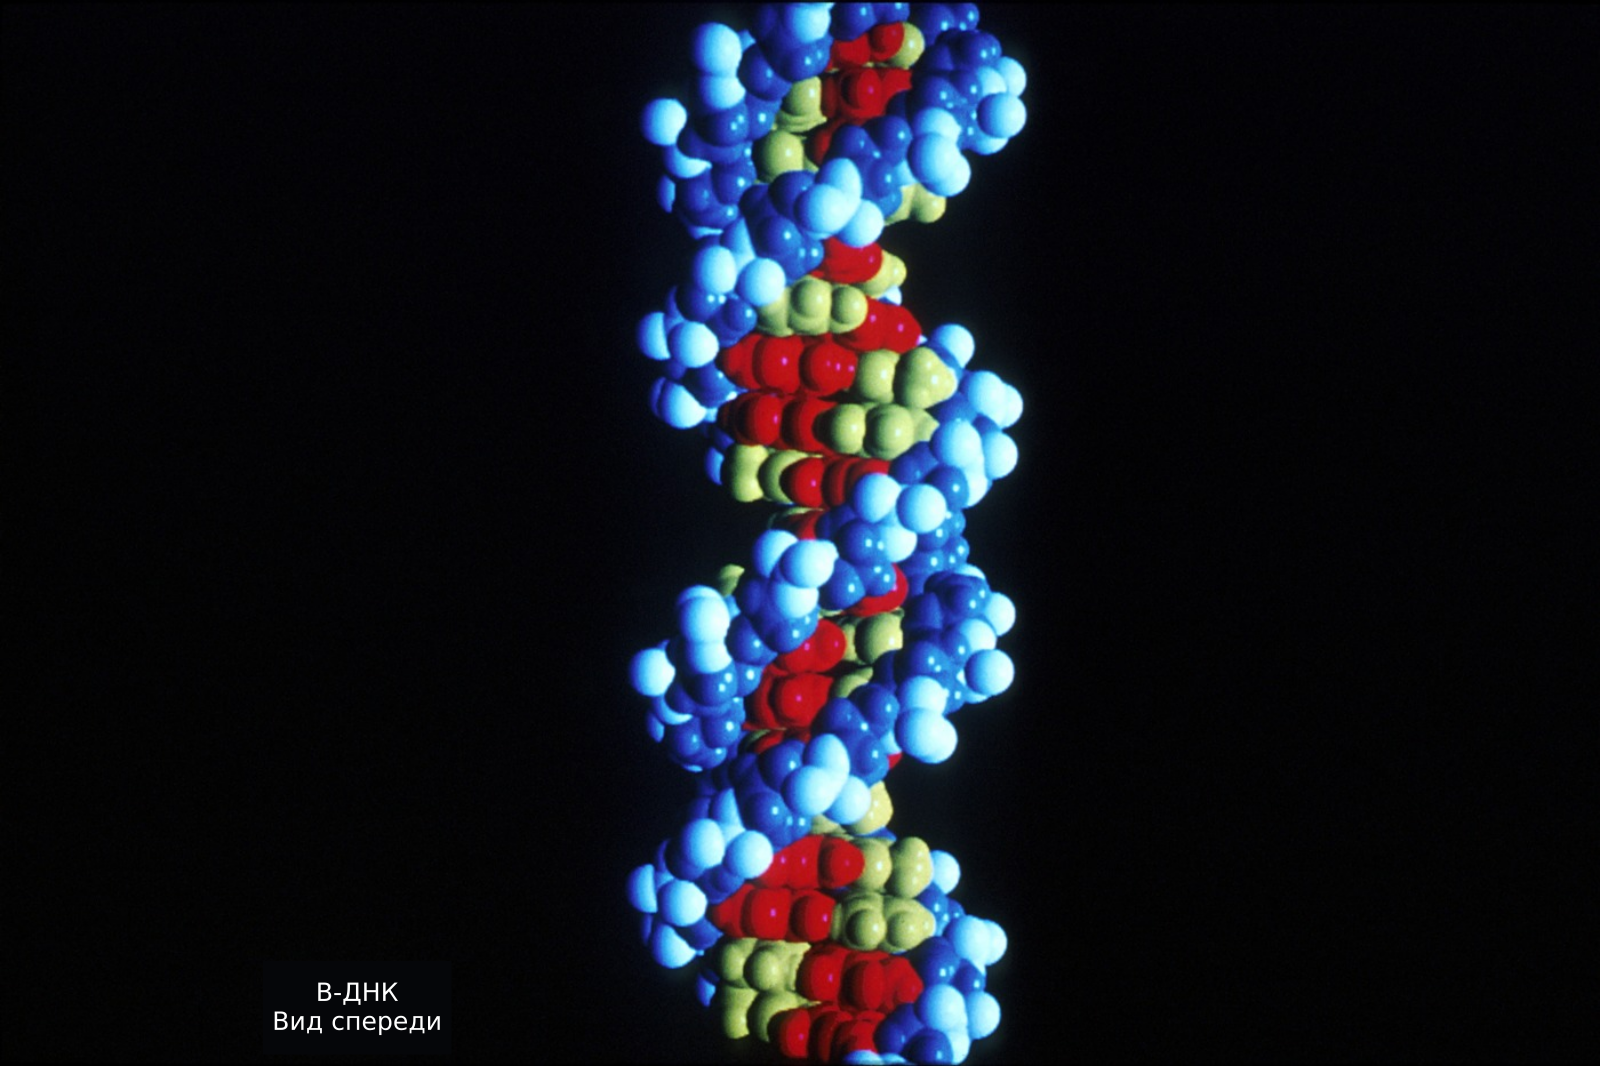
Наследственная информация записана порядком нуклеотидов ДНК. Каждый нуклеотид содержит дезоксирибозу, фосфат и одно из четырёх оснований: A, T, G или C. Две полинуклеотидные цепи антипараллельны: одна направлена 5′→3′, другая 3′→5′. Основания обращены внутрь двойной спирали и образуют комплементарные пары A–T и G–C. Между A и T две водородные связи, между G и C — три; однако устойчивость молекулы определяется не только их числом, но и взаимодействием соседних оснований. Сахарофосфатный остов соединён прочными ковалентными фосфодиэфирными связями.
Комплементарность обеспечивает возможность матричного синтеза: последовательность одной цепи однозначно задаёт последовательность второй. Антипараллельность важна потому, что полимеразы присоединяют нуклеотид только к 3′-концу растущей цепи и синтезируют её 5′→3′. Ген — участок ДНК, продуктом которого является функциональная РНК; для белок-кодирующего гена эта РНК служит матрицей белка. В состав гена входят не только кодирующие участки, но и регуляторные последовательности, определяющие место, время и интенсивность транскрипции.
02. Репликация: полуконсервативность и точность
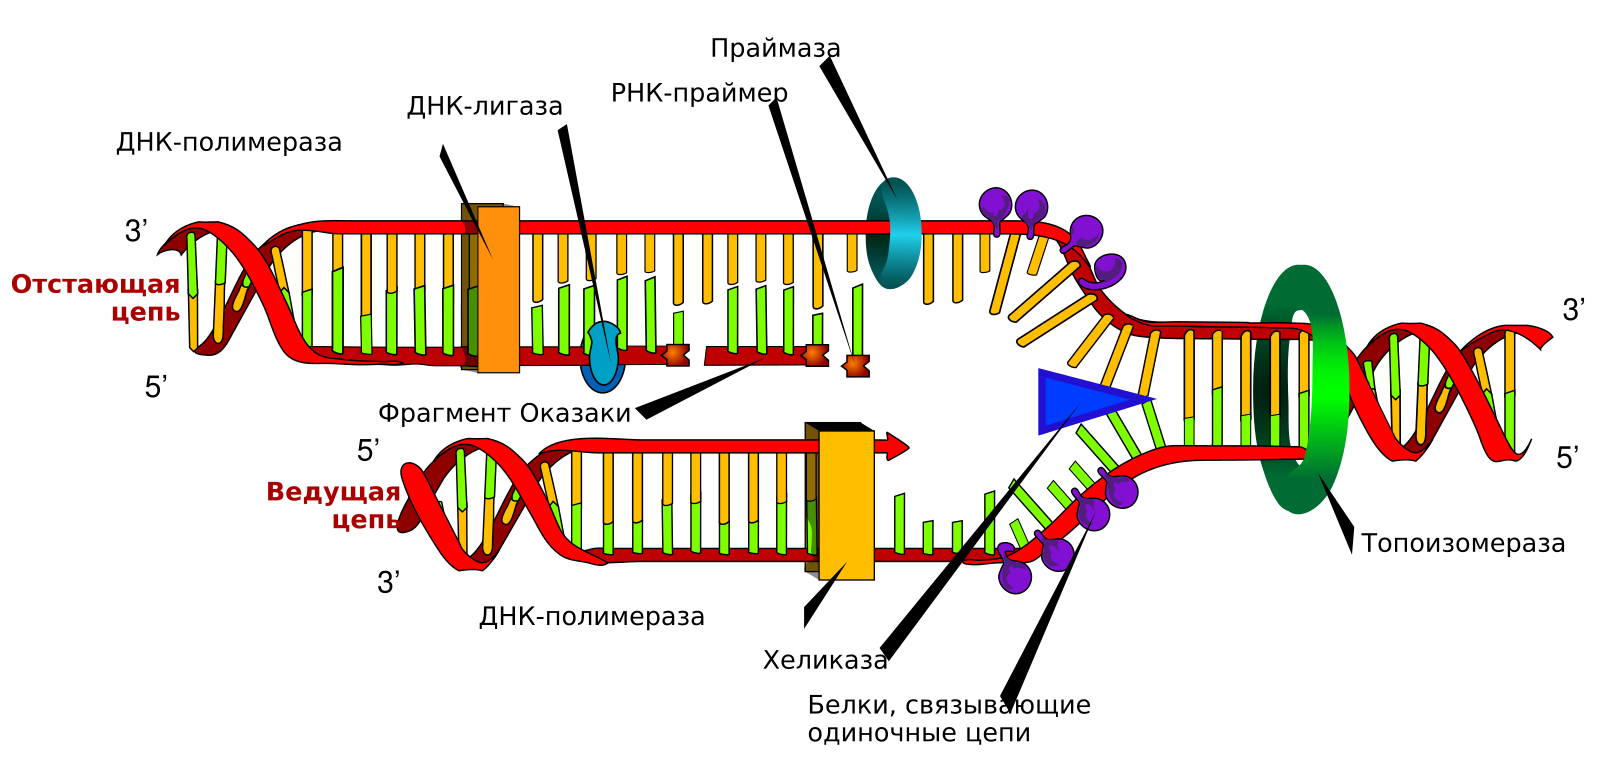
Перед делением ДНК удваивается. Хеликаза разрывает водородные связи и раскрывает двойную спираль, топоизомераза снимает избыточное закручивание, одноцепочечные участки стабилизируют специальные белки. Праймаза синтезирует короткий РНК-праймер, от свободного 3′-конца которого ДНК-полимераза начинает удлинение. Каждая дочерняя молекула получает одну старую и одну новую цепь, поэтому репликация полуконсервативна. Эксперимент Мезельсона и Сталя с ¹⁵N показал после одного поколения единственную гибридную полосу, а после двух — гибридную и лёгкую.
Из-за антипараллельности ведущая цепь синтезируется непрерывно по направлению движения вилки, а отстающая — короткими фрагментами Оказаки. После удаления РНК-праймеров промежутки заполняются ДНК, а ДНК-лигаза соединяет фрагменты фосфодиэфирными связями. У эукариот на каждой хромосоме одновременно работают многие точки начала репликации, иначе копирование длинной ДНК заняло бы слишком много времени. Теломераза достраивает концы линейных хромосом в клетках, где должна поддерживаться способность к многократным делениям.
03. Генетический код
Генетический код — соответствие между триплетами нуклеотидов мРНК и аминокислотами или сигналами окончания трансляции. Код триплетен: один кодон содержит три нуклеотида. Он однозначен: конкретный кодон задаёт только одну аминокислоту или стоп-сигнал. Код вырожден: одну аминокислоту могут задавать несколько кодонов. Кодоны считываются последовательно, без перекрытий и запятых, в одной рамке от старт-кодона. AUG обычно задаёт метионин и определяет начало рамки, UAA, UAG и UGA являются стоп-кодонами.
Почти универсальность кода — аргумент общего происхождения живых организмов, хотя существуют редкие варианты, например в митохондриях. Вырожденность чаще связана с третьей позицией кодона; поэтому замена третьего нуклеотида может быть синонимической. Но «избыточность» не означает двусмысленность: один кодон не кодирует две разные аминокислоты. Рамка считывания принципиальна: вставка или выпадение числа нуклеотидов, не кратного трём, изменяет все последующие кодоны.
Стандартный генетический код. Кодоны мРНК записаны 5′→3′. Во втором–пятом столбцах указано второе основание; первое и третье заданы слева. AUG — метионин и обычный стартовый кодон.
| 1-е и 3-е основания | U | C | A | G |
|---|---|---|---|---|
U…U | UUU — Фен | UCU — Сер | UAU — Тир | UGU — Цис |
U…C | UUC — Фен | UCC — Сер | UAC — Тир | UGC — Цис |
U…A | UUA — Лей | UCA — Сер | UAA — Стоп | UGA — Стоп |
U…G | UUG — Лей | UCG — Сер | UAG — Стоп | UGG — Три |
C…U | CUU — Лей | CCU — Про | CAU — Гис | CGU — Арг |
C…C | CUC — Лей | CCC — Про | CAC — Гис | CGC — Арг |
C…A | CUA — Лей | CCA — Про | CAA — Глн | CGA — Арг |
C…G | CUG — Лей | CCG — Про | CAG — Глн | CGG — Арг |
A…U | AUU — Иле | ACU — Тре | AAU — Асн | AGU — Сер |
A…C | AUC — Иле | ACC — Тре | AAC — Асн | AGC — Сер |
A…A | AUA — Иле | ACA — Тре | AAA — Лиз | AGA — Арг |
A…G | AUG — Мет | ACG — Тре | AAG — Лиз | AGG — Арг |
G…U | GUU — Вал | GCU — Ала | GAU — Асп | GGU — Гли |
G…C | GUC — Вал | GCC — Ала | GAC — Асп | GGC — Гли |
G…A | GUA — Вал | GCA — Ала | GAA — Глу | GGA — Гли |
G…G | GUG — Вал | GCG — Ала | GAG — Глу | GGG — Гли |
04. Транскрипция у прокариот и эукариот
Транскрипция — синтез РНК на матрице ДНК. РНК-полимераза узнаёт промотор, локально расплетает ДНК и использует только одну цепь гена как матричную. Она движется по матрице 3′→5′, а РНК синтезирует 5′→3′. Рибонуклеотиды соединяются фосфодиэфирными связями по правилу комплементарности: A матрицы соответствует U в РНК, T — A, G — C, C — G. После прохождения терминатора синтез прекращается, РНК отделяется, а цепи ДНК снова соединяются.
Разные гены могут использовать разные цепи одной молекулы ДНК; поэтому нельзя заранее называть одну физическую цепь всегда «смысловой». Кодирующая цепь конкретного гена имеет последовательность, совпадающую с РНК за исключением T/U, а матричная комплементарна ей. У бактерий транскрипция происходит в цитоплазме и может быть сопряжена с трансляцией: рибосомы начинают читать мРНК ещё до окончания её синтеза. У эукариот транскрипция идёт в ядре, а зрелая мРНК должна пройти процессинг и выйти через ядерную пору.
05. Процессинг РНК у эукариот
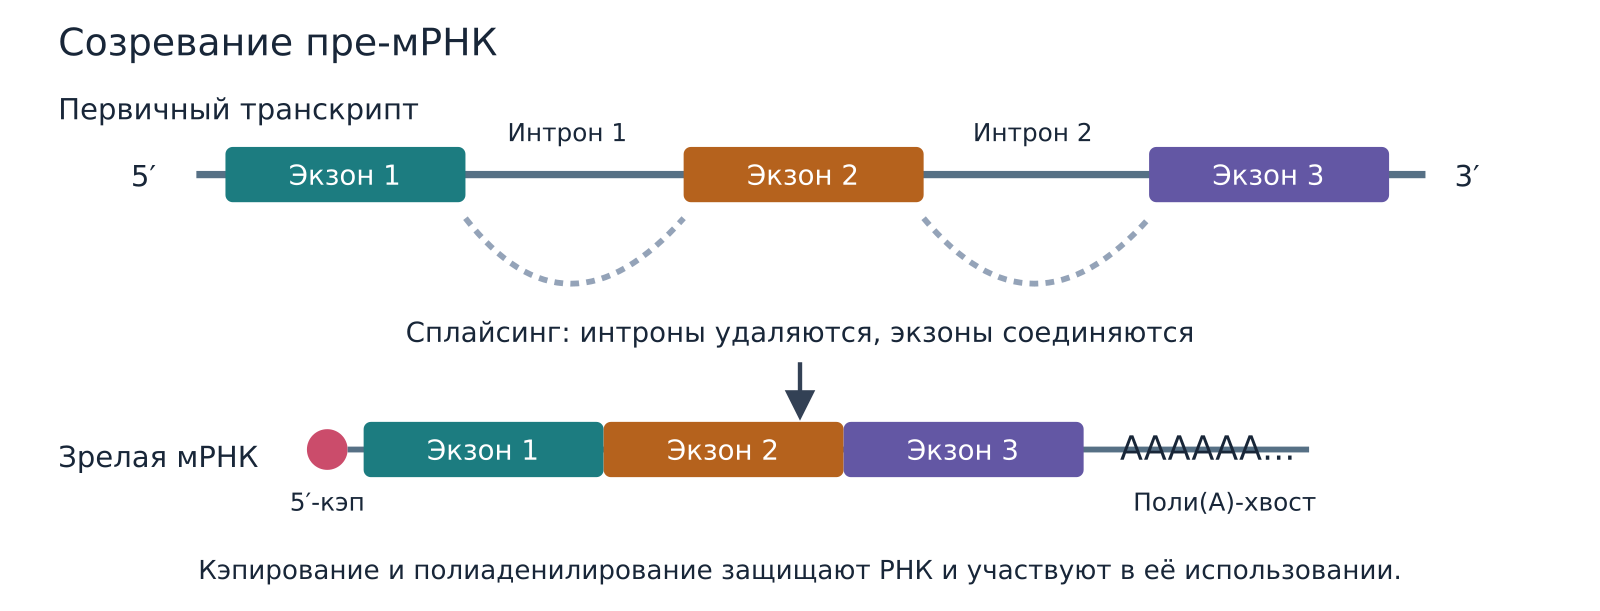
Первичный транскрипт эукариотического белок-кодирующего гена — пре-мРНК — обычно содержит экзоны и интроны. На 5′-конец добавляется модифицированный гуанозиновый кэп, который защищает РНК, участвует в экспорте и распознавании рибосомой. 3′-конец расщепляется и получает поли(А)-хвост, повышающий стабильность и влияющий на эффективность трансляции. Сплайсосома распознаёт границы интронов, вырезает их в форме лассо и соединяет соседние экзоны. После процессинга зрелая мРНК покидает ядро.
Альтернативный сплайсинг позволяет соединять экзоны в разных сочетаниях и получать несколько вариантов мРНК и белка из одного гена. Это не меняет последовательность геномной ДНК. Ошибка в участке сплайсинга может привести к сохранению интрона, пропуску экзона или сдвигу рамки и поэтому быть не менее серьёзной, чем мутация в кодоне. Не все РНК проходят одинаковый процессинг: рРНК расщепляется и модифицируется в ядрышке, тРНК обрезается, модифицируется и получает концевую последовательность CCA.
06. тРНК, аминоацил-тРНК-синтетазы и рибосома
тРНК выполняет роль адаптера между языком нуклеотидов и аминокислот. В её структуре есть антикодон, комплементарный кодону мРНК, и 3′-конец CCA, к которому присоединяется аминокислота. Правильную аминокислоту выбирает не рибосома, а специфическая аминоацил-тРНК-синтетаза. Фермент узнаёт аминокислоту и соответствующие тРНК, затрачивает АТФ и создаёт высокоэнергетическую связь. Ошибка этого фермента опасна: рибосома проверяет соответствие кодон–антикодон, но не способна определить, какая аминокислота фактически прикреплена.
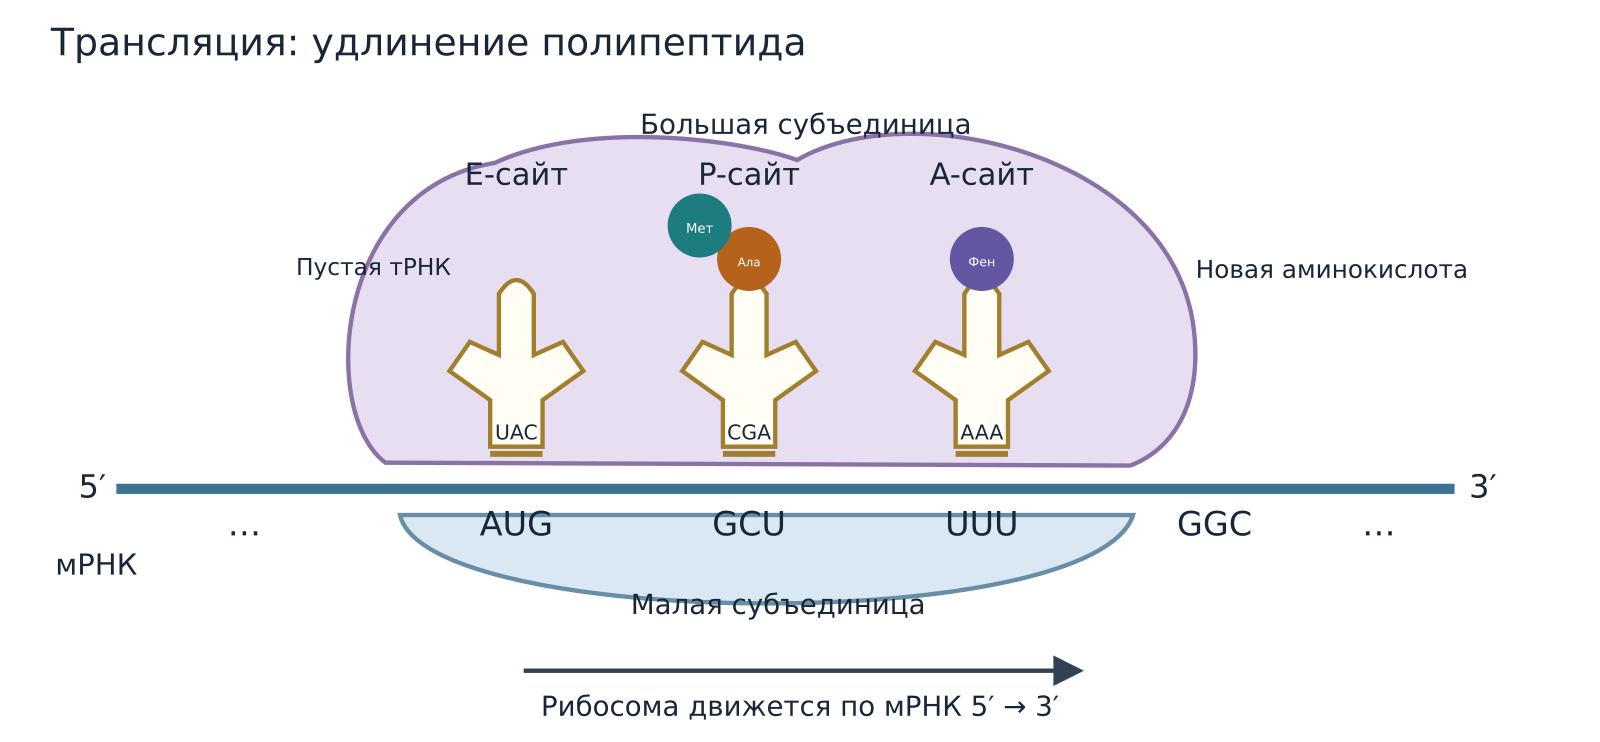
Рибосома состоит из малой и большой субъединиц, построенных из рРНК и белков. Малая субъединица декодирует мРНК, большая катализирует образование пептидной связи; каталитический центр содержит рРНК, поэтому рибосома — рибозим. В ней выделяют A-, P- и E-сайты: новая аминоацил-тРНК входит в A-сайт, тРНК с растущей цепью находится в P-сайте, освобождённая выходит через E-сайт.
07. Трансляция: инициация, элонгация, терминация
При инициации малая субъединица рибосомы связывается с мРНК, стартовая тРНК с метионином распознаёт AUG, затем присоединяется большая субъединица. Во время элонгации очередная аминоацил-тРНК входит в A-сайт. Пептидилтрансферазный центр переносит растущую цепь с тРНК P-сайта на аминокислоту в A-сайте. Затем рибосома смещается на один кодон: новая пептидил-тРНК переходит в P-сайт, пустая — в E-сайт и выходит. Полипептид растёт от N-конца к C-концу.
Когда в A-сайт попадает стоп-кодон, соответствующей тРНК нет. Его распознаёт белковый фактор терминации, который вызывает гидролиз связи между полипептидом и тРНК. Комплекс распадается, а полипептид сворачивается, может расщепляться, фосфорилироваться, гликозилироваться или направляться в органоид. Белки для секреции и мембран часто начинают синтезироваться в цитозоле, но сигнальная последовательность переводит рибосому на шероховатую ЭПС.
08. Центральная догма и исключения
Основной поток информации в клетке можно представить как ДНК → РНК → белок. ДНК реплицируется, на её матрице транскрибируется РНК, а последовательность мРНК транслируется в белок. Белок влияет на признак через каталитическую, структурную, рецепторную или регуляторную функцию. Эта схема не означает, что один ген всегда задаёт один видимый признак: один белок может участвовать во многих процессах, один признак зависит от многих генов и среды, а часть генов образует функциональные РНК, которые вообще не переводятся.
Обратная транскриптаза синтезирует ДНК на матрице РНК у ретровирусов и ретротранспозонов. РНК-зависимые РНК-полимеразы копируют РНК у многих вирусов. Эти потоки расширяют схему, но не показывают перенос последовательностной информации от белка обратно к нуклеиновой кислоте. Эпигенетические метки меняют активность генов без изменения последовательности ДНК и могут сохраняться при делении клеток.
09. Организация генома прокариот и эукариот
У бактерий основной геном обычно представлен кольцевой молекулой ДНК в нуклеоиде; часто присутствуют плазмиды. Гены функционально связанных белков могут объединяться в оперон и транскрибироваться в одну полицистронную мРНК. Геном компактен, доля некодирующих последовательностей относительно мала, транскрипция и трансляция пространственно не разделены. У эукариот линейные хромосомы находятся в ядре, ДНК связана с гистонами, большинство мРНК моноцистронные, гены содержат интроны и удалённые регуляторные элементы.
Нуклеосома состоит из участка ДНК, обёрнутого вокруг октамера гистонов. Степень упаковки регулирует доступ белков транскрипции. Эухроматин обычно менее конденсирован и доступнее, гетерохроматин плотнее и часто транскрипционно неактивен. Ацетилирование хвостов гистонов нередко ослабляет взаимодействие с ДНК и связано с активацией, а метилирование ДНК промоторов часто подавляет транскрипцию, хотя эффект конкретной метки зависит от контекста.
10. Регуляция экспрессии и лактозный оперон
Лактозный оперон E. coli содержит структурные гены lacZ, lacY и lacA, общий промотор и оператор. Без лактозы активный репрессор связывается с оператором и мешает РНК-полимеразе, поэтому транскрипция почти выключена. При наличии лактозы её производное аллолактоза связывает репрессор, изменяет его форму и освобождает оператор. Это отрицательная индуцируемая регуляция: субстрат включает синтез белков, необходимых для его использования.
Максимальная экспрессия возникает, когда лактоза есть, а глюкозы мало. Низкая глюкоза повышает cAMP; комплекс cAMP–CAP связывается около промотора и помогает РНК-полимеразе. Если глюкозы много, cAMP мало и даже при снятом репрессоре транскрипция остаётся умеренной. Такая логика позволяет бактерии сначала использовать энергетически выгодную глюкозу и не тратить ресурсы на ненужные ферменты.
11. Регуляция генов у эукариот
Эукариотический ген регулируется на нескольких уровнях. Активаторы и репрессоры связываются с промотором, энхансерами и сайленсерами; петля ДНК сближает удалённый элемент с комплексом транскрипции. Ремоделирующие комплексы перемещают нуклеосомы, модификации гистонов и метилирование ДНК меняют доступность. После транскрипции выбор сайта сплайсинга, полиаденилирования и редактирование РНК создают разные транскрипты. Стабильность мРНК, микроРНК, скорость инициации трансляции и разрушение белка дополнительно определяют количество продукта.
Один и тот же ген может включаться в разных тканях разными энхансерами. Мутация тканеспецифичного энхансера нарушит признак только там, где этот элемент используется, тогда как разрушение кодирующей области затронет все ткани, нуждающиеся в белке. МикроРНК в составе комплекса RISC комплементарно связывается с мРНК и вызывает её разрушение или торможение трансляции. Убиквитин маркирует многие белки для протеасомы, поэтому одинаковый уровень мРНК не гарантирует одинаковый уровень белка.
12. Мутации, репарация и последствия для белка
Замена нуклеотида бывает синонимической, миссенс или нонсенс; вставка и делеция могут сохранять рамку, если их длина кратна трём, или сдвигать её. Мутации промотора меняют количество РНК, участков сплайсинга — состав зрелого транскрипта, стоп-сигнала — длину белка. Последствие зависит от положения: замена в активном центре, трансмембранном домене или сигнале адресации обычно серьёзнее, чем на гибкой поверхности. Консервативная аминокислотная замена сохраняет заряд и размер и иногда мало влияет на структуру.
ДНК постоянно повреждается ультрафиолетом, активными формами кислорода и химическими агентами. Фотореактивация у многих организмов прямо исправляет пиримидиновые димеры; эксцизионная репарация вырезает повреждённый участок и достраивает его; mismatch-репарация исправляет ошибки после репликации; двуцепочечные разрывы восстанавливаются гомологичной рекомбинацией или соединением концов. Ошибка становится стабильной мутацией, если повреждение скопировано и не исправлено.
13. Методы чтения и анализа наследственной информации
Полимеразная цепная реакция многократно копирует выбранный участок ДНК. Каждый цикл включает денатурацию цепей, отжиг двух праймеров и удлинение термостабильной полимеразой. Праймеры задают границы ампликона и должны быть комплементарны противоположным цепям. Контроль без матрицы выявляет загрязнение, положительный контроль подтверждает работоспособность смеси. ПЦР показывает наличие и размер фрагмента, но без дополнительных методов не всегда сообщает его точную последовательность.
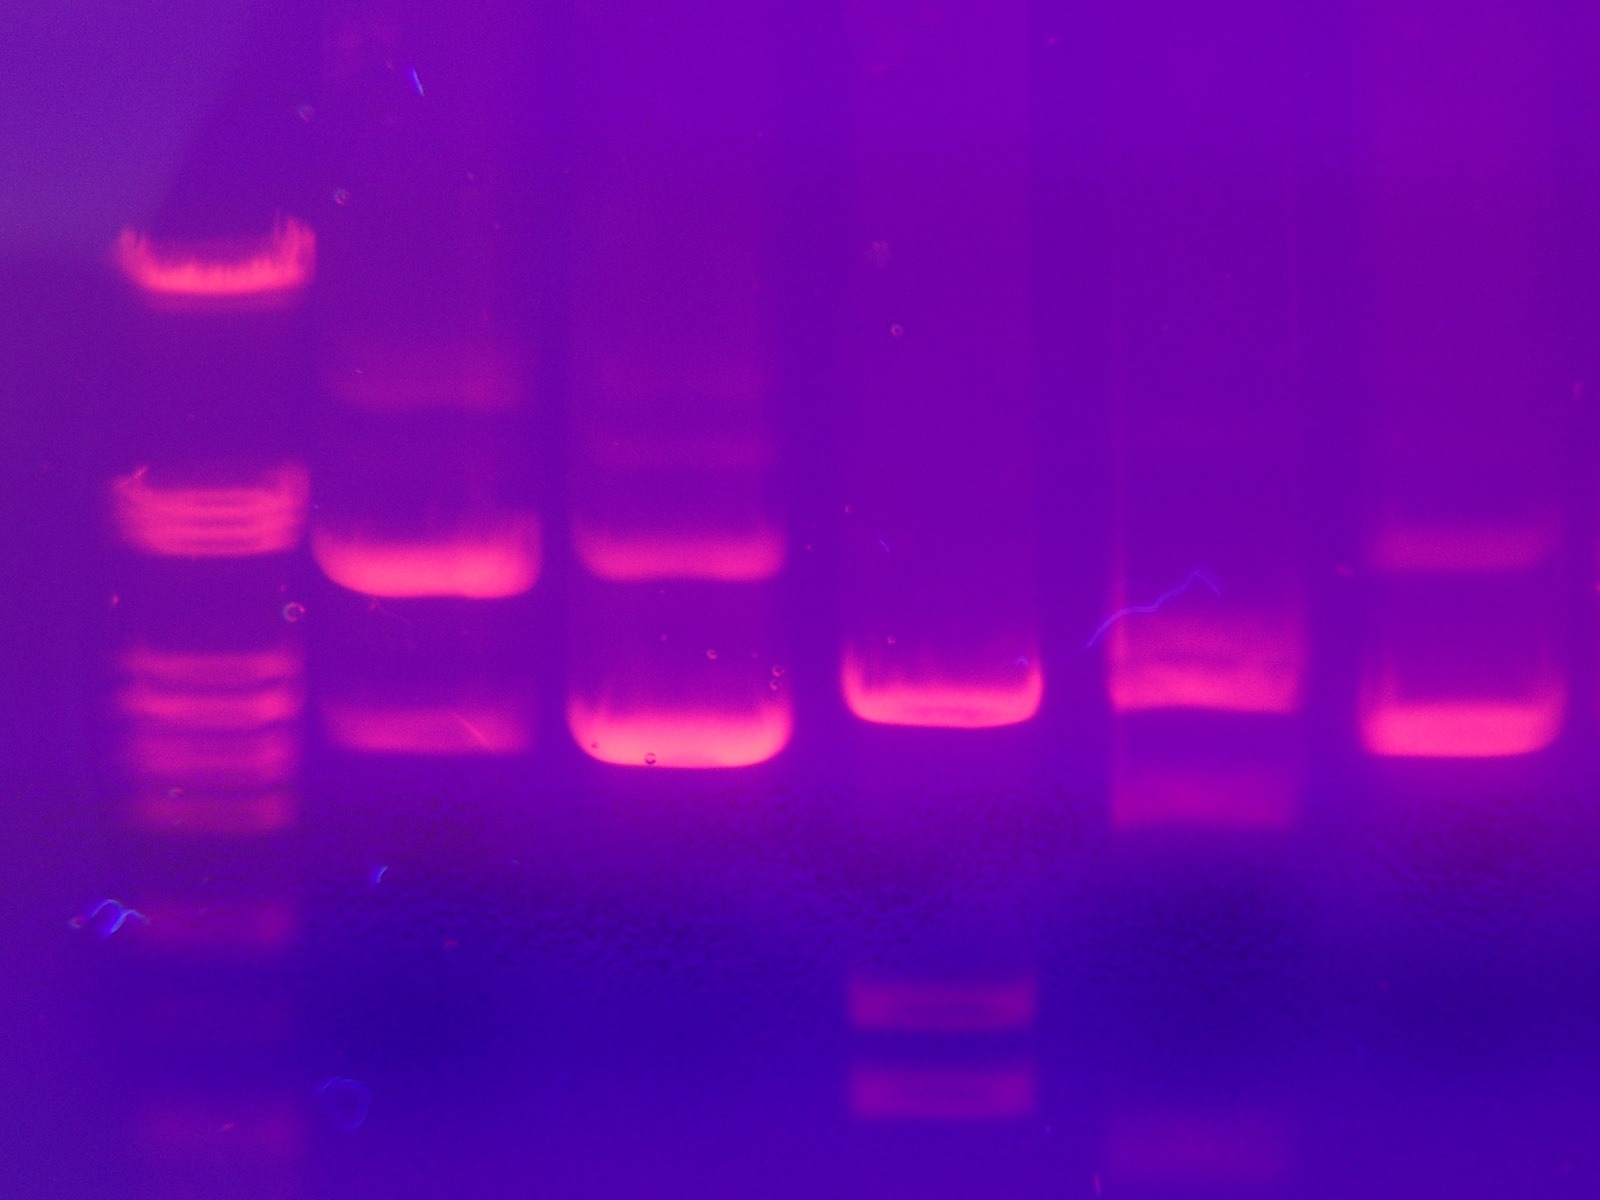
Гель-электрофорез разделяет фрагменты нуклеиновых кислот по длине: отрицательно заряженная ДНК движется к положительному электроду, короткие фрагменты проходят через поры быстрее. Секвенирование определяет порядок нуклеотидов, а анализ РНК показывает активные транскрипты. Для сравнения экспрессии нормируют сигнал на количество материала и стабильные контрольные гены; иначе различие может отражать просто разное число клеток.
14. Единый алгоритм матричных синтезов
Репликация, транскрипция и трансляция используют матрицу, комплементарность и направленность, но их нельзя смешивать. Репликация копирует весь геном перед делением, использует дезоксирибонуклеотиды, праймер и ДНК-полимеразу и создаёт ДНК. Транскрипция выбирает отдельные гены, использует рибонуклеотиды и РНК-полимеразу и создаёт РНК. Трансляция использует мРНК, тРНК, рибосому и аминокислоты; комплементарность действует между кодоном и антикодоном, а продуктом является полипептид.
Направления дают универсальную проверку. Нуклеиновые кислоты синтезируются 5′→3′, потому что новый мономер присоединяется к 3′-OH. Полимераза читает матрицу 3′→5′. Рибосома движется по мРНК 5′→3′, а белок растёт от N-конца к C-концу. Если схема показывает обратное, это либо ошибка, либо должна быть явно названа другая цепь/ориентация.
| Процесс | Матрица | Продукт и направление |
|---|---|---|
Репликация | ДНК, чтение 3′→5′ | ДНК, синтез 5′→3′ |
Транскрипция | ДНК, чтение 3′→5′ | РНК, синтез 5′→3′ |
Трансляция | мРНК, чтение 5′→3′ | Полипептид, рост N→C |
15. Углубление: матрица, направление и комплементарность
В задачах нужно сначала подписать концы цепей. ДНК-полимераза и РНК-полимераза синтезируют новую цепь только в направлении 5′→3′, считывая матрицу 3′→5′. Кодирующая цепь ДНК совпадает с мРНК по последовательности, если заменить T на U; матричная цепь ей комплементарна и антипараллельна. Ошибка в выборе цепи меняет весь ответ, поэтому направление следует фиксировать до использования таблицы генетического кода.
При оценке мутации различают изменение количества продукта и изменение его свойства. Делеция промотора уменьшает транскрипцию, мутация сайта сплайсинга меняет зрелую мРНК, а миссенс-мутация может оставить количество белка нормальным, но изменить активный центр. Этот порядок рассуждения помогает не смешивать уровни регуляции.