

Клеточный цикл, митоз, мейоз и образование гамет.
Содержание урока
- Клеточный цикл и контрольные точки · 70+
- Хромосома, хроматида, центромера и кинетохор · 70+
- Митоз: стадии и механизм · 70+
- Биологическое значение и регуляция митоза · 80+
- Мейоз I: синапсис, кроссинговер и редукция · 80+
- Мейоз II и генетический результат · 80+
- Кроссинговер и генетические карты · 90+
- Нерасхождение и хромосомные нарушения · 90+
- Сперматогенез и оогенез · 80+
- Апоптоз, некроз и клеточное старение · 80+
- Универсальный алгоритм расчётов n и c · 80+
- Микроскопия делящихся клеток · 80+
- Клеточный цикл, старение и опухолевая трансформация · 90+
- Мейоз как источник разнообразия и объект отбора · 90+
Как работать с уроком
70+ — обязательное ядро; 80+ — объяснение механизмов и применение; 90+ — углубление, эксперимент и перенос знаний. Это ориентиры сложности, а не обещание экзаменационного балла.
После урока: Различать гомологи и хроматиды; считать хромосомы и ДНК; объяснять ошибки деления.
01. Клеточный цикл и контрольные точки
70+
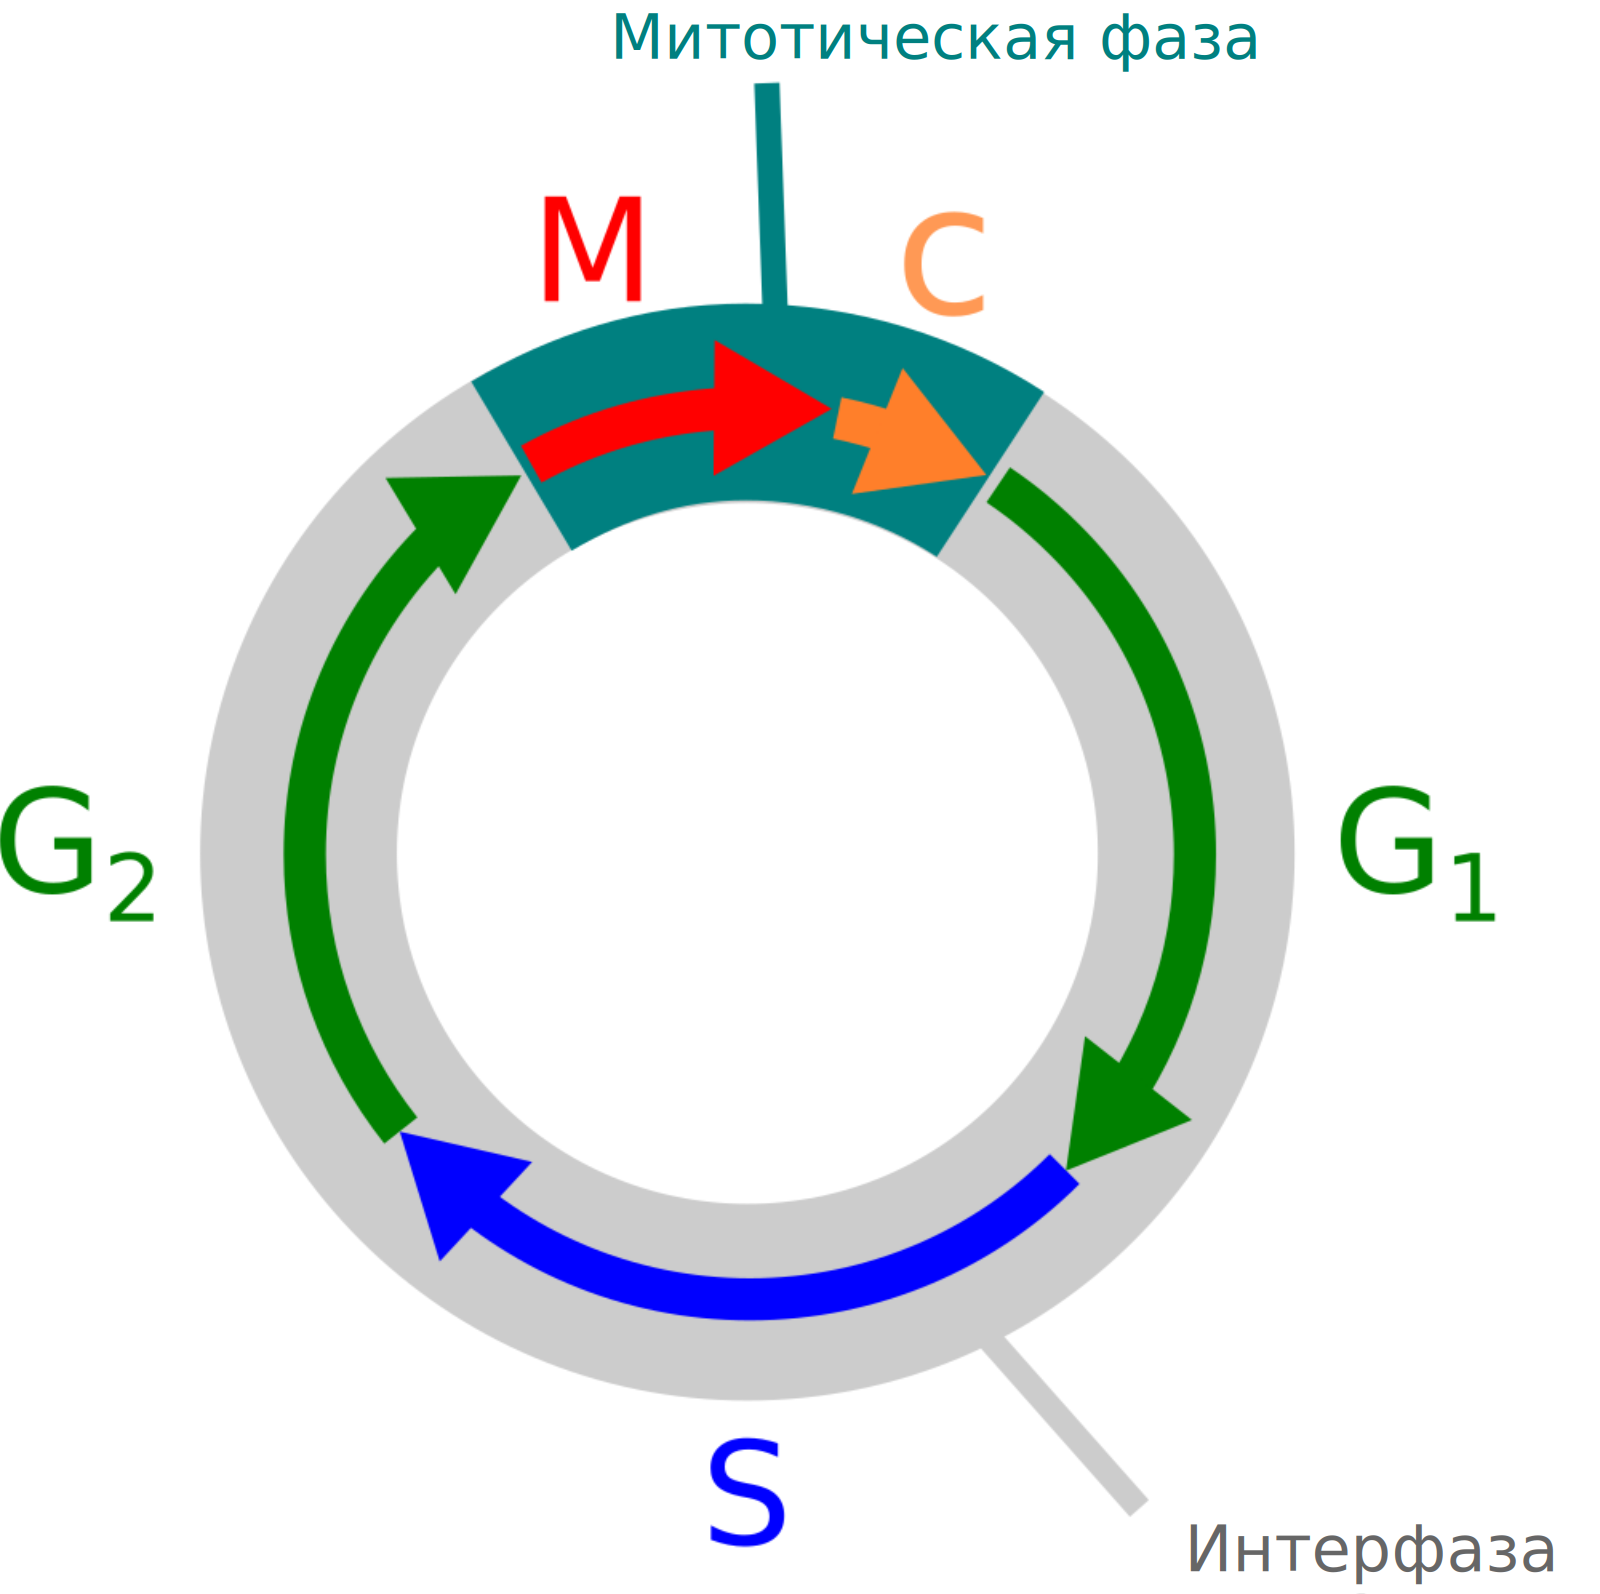
Клеточный цикл охватывает период от образования клетки до её следующего деления или выхода из цикла. Интерфаза состоит из G₁-, S- и G₂-периодов. В G₁ клетка растёт, синтезирует РНК и белки, увеличивает число органоидов; в S-периоде реплицируется ДНК; у клеток с центросомами начинается также дупликация центриолей; в G₂ синтезируются компоненты веретена и проверяется завершённость репликации. M-фаза включает деление ядра и цитокинез. Некоторые дифференцированные клетки переходят в G₀: они сохраняют метаболизм, но временно или постоянно не вступают в деление.
Контрольная точка G₁/S оценивает размер клетки, питание, ростовые сигналы и повреждения ДНК. Точка G₂/M не допускает митоз при незавершённой репликации или разрывах. Контроль веретена в метафазе проверяет прикрепление кинетохоров сестринских хроматид к противоположным полюсам. Циклины и циклин-зависимые киназы образуют переключатели: концентрация циклинов меняется, а фосфорилирование мишеней запускает следующий этап. При неисправимом повреждении включаются старение или апоптоз.
На что обратить внимание в ЕГЭ
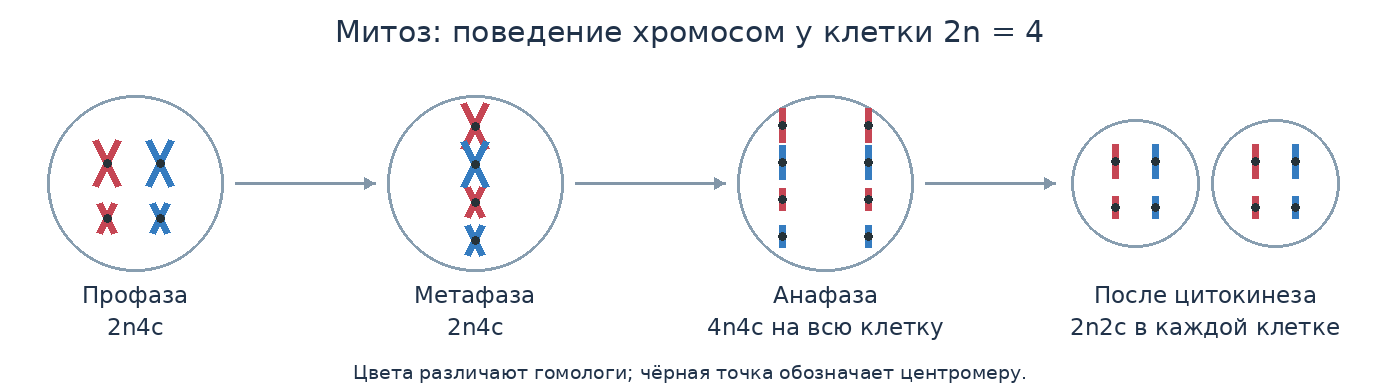
В задачах различайте число хромосом n и количество ДНК c. После S-периода число хромосом по центромерам не меняется: клетка остаётся 2n, но ДНК становится 4c, потому что каждая хромосома состоит из двух сестринских хроматид. В анафазе митоза сестринские хроматиды становятся самостоятельными хромосомами, поэтому в одной ещё не разделившейся клетке временно 4n4c; после цитокинеза каждая дочерняя клетка имеет 2n2c.
02. Хромосома, хроматида, центромера и кинетохор
70+
Хромосома — молекула ДНК с белками, рассматриваемая как единица наследственного материала. До репликации она однохроматидная, после S-периода — двуххроматидная. Сестринские хроматиды являются копиями одной хромосомы и соединены когезиновыми комплексами. Центромера — специализированный участок ДНК, на котором собирается белковый кинетохор; к кинетохору присоединяются микротрубочки веретена. Гомологичные хромосомы имеют одинаковый набор генов в соответствующих локусах, но могут нести разные аллели и происходят от разных родителей.
Конденсация хроматина начинается в профазе благодаря конденсинам. Компактные хромосомы меньше перепутываются и повреждаются при движении. В анафазе сепараза расщепляет когезин в области центромер, позволяя сестринским хроматидам разойтись. Микротрубочки кинетохора укорачиваются, а полюсные микротрубочки раздвигают полюса. После распределения хромосом оболочка ядра восстанавливается и хроматин деконденсируется, снова становясь доступным для транскрипции.
На что обратить внимание в ЕГЭ
Типичная ошибка — называть две хроматиды «парой гомологичных хромосом». Сестринские хроматиды возникли при копировании одной хромосомы; гомологи — материнская и отцовская версии. Число хромосом считают по центромерам, а не по числу нитей ДНК. На метафазной фотографии X-образный объект — одна двуххроматидная хромосома, а не две. После расхождения каждая бывшая хроматида становится отдельной однохроматидной хромосомой.
03. Митоз: стадии и механизм
70+
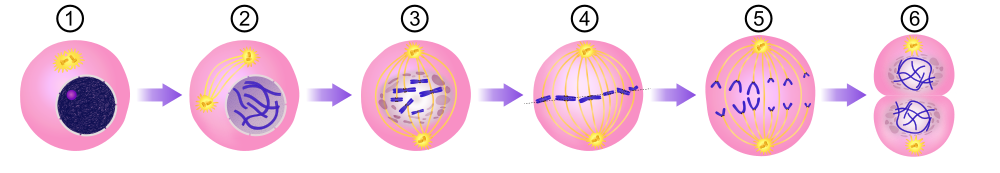
В профазе хромосомы конденсируются, ядрышки исчезают, формируется веретено; в прометафазе разрушается ядерная оболочка и микротрубочки захватывают кинетохоры. В метафазе двуххроматидные хромосомы выстраиваются в экваториальной плоскости. Каждый кинетохор сестринских хроматид связан с противоположным полюсом. После успешной проверки веретена начинается анафаза: центромерный когезин расщепляется, сестринские хроматиды расходятся. В телофазе вокруг наборов хромосом образуются ядра, хромосомы деконденсируются.
Цитокинез у животных происходит благодаря актин-миозиновому кольцу, которое образует борозду деления. У растений жёсткая клеточная стенка не позволяет перетянуть клетку; пузырьки комплекса Гольджи сливаются в экваторе и формируют клеточную пластинку, превращающуюся в новую стенку и мембраны. Митоз обеспечивает генетическую стабильность: при отсутствии мутаций и ошибок две дочерние клетки получают одинаковые наборы хромосом и аллелей.
На что обратить внимание в ЕГЭ
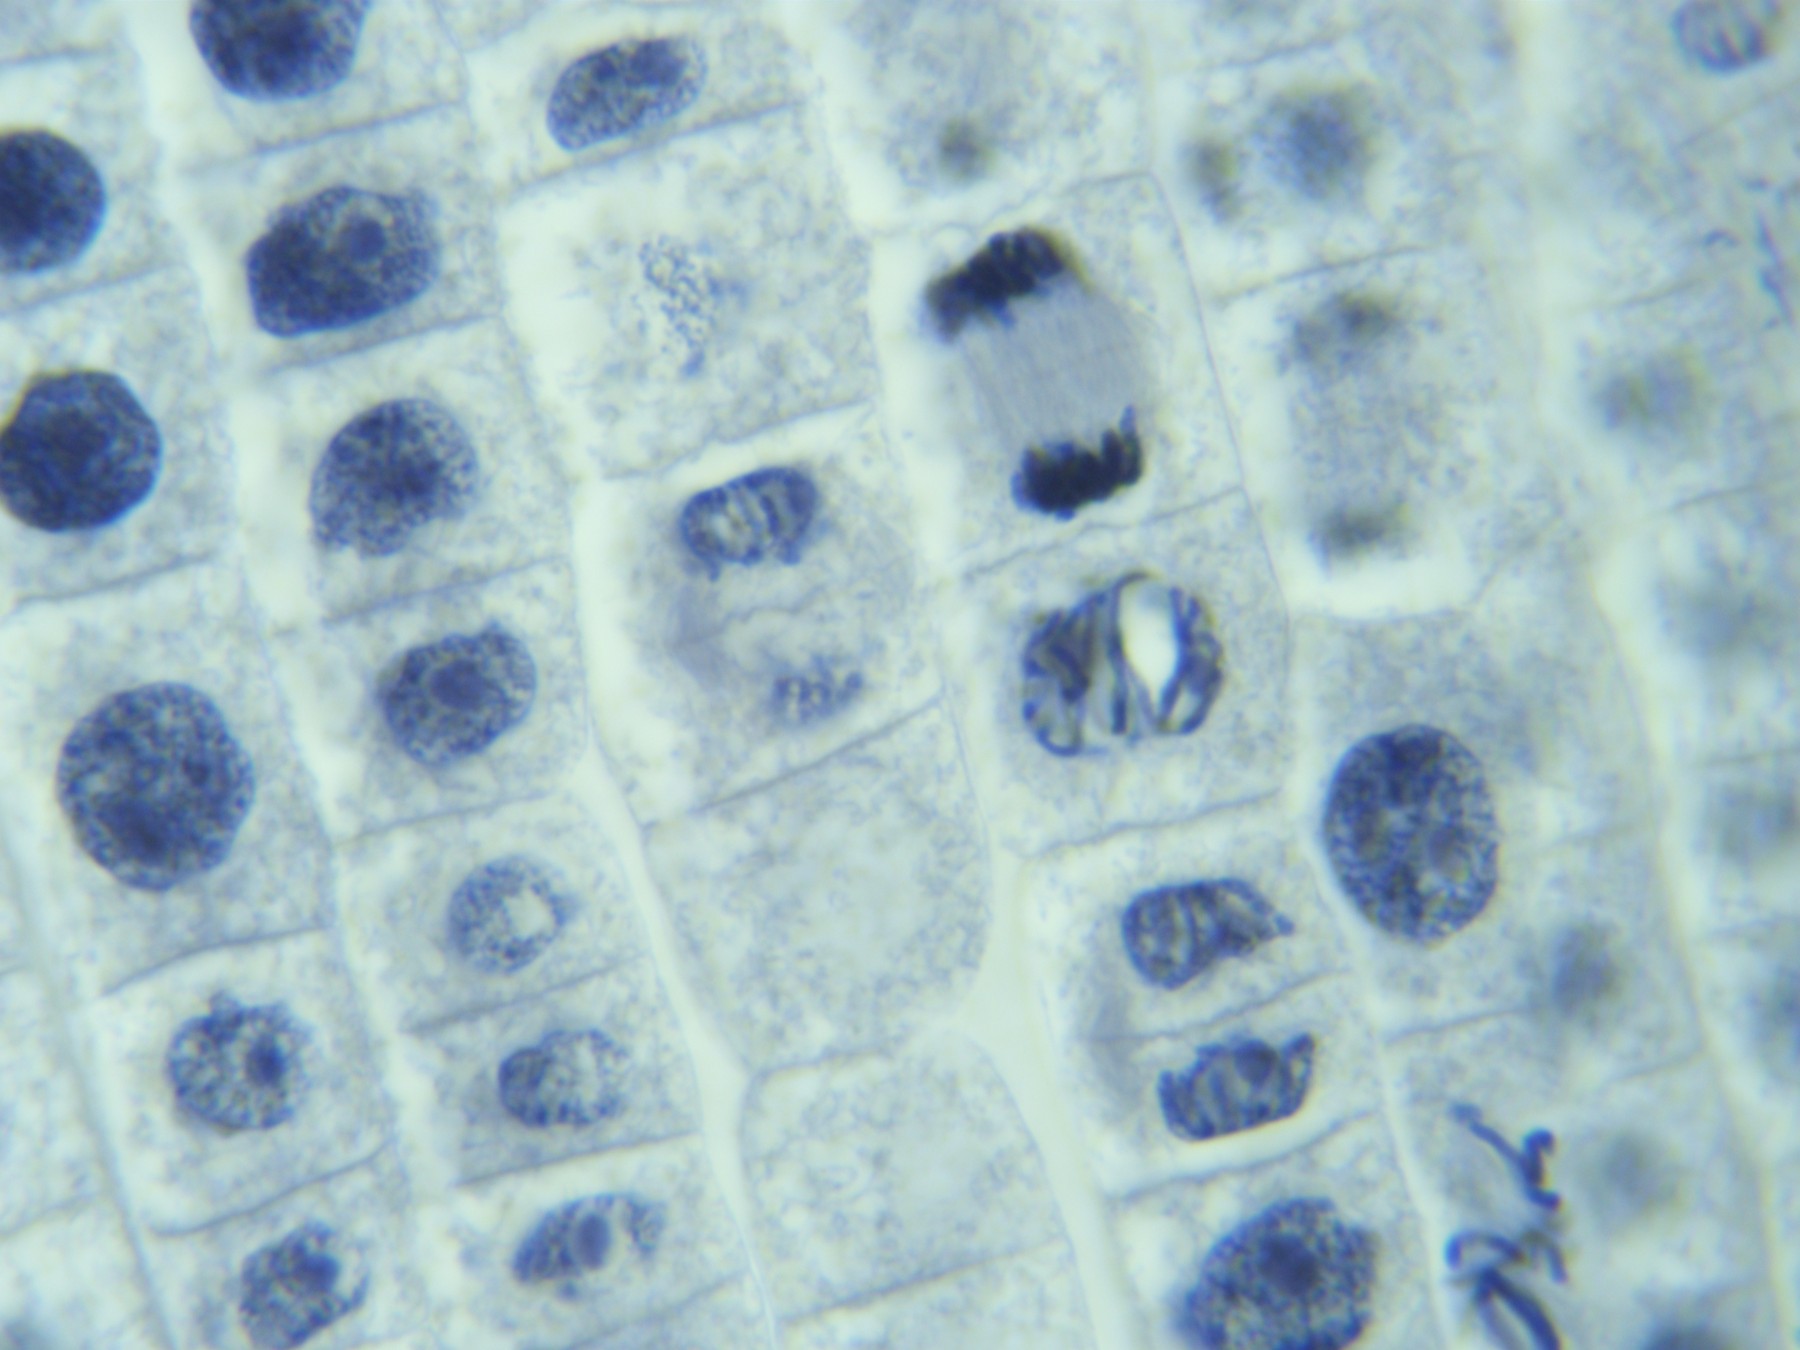
На микрофотографии профазу узнают по конденсированным, но не выстроенным хромосомам; метафазу — по экваториальной пластинке; анафазу — по двум расходящимся группам; телофазу — по двум формирующимся ядрам. Нельзя определять стадию только по «двум пятнам»: это может быть телофаза или две соседние интерфазные клетки. Сначала найдите границы одной клетки, затем положение и форму хромосом.
04. Биологическое значение и регуляция митоза
80+
Митоз лежит в основе эмбрионального и постэмбрионального роста, обновления тканей, регенерации и бесполого размножения многих организмов. В многоклеточном организме деление согласовано с соседними клетками и сигналами факторов роста. Контактное торможение, зависимость от прикрепления к матриксу и контроль повреждений ограничивают пролиферацию. Стволовые клетки способны к самообновлению и дают дифференцирующееся потомство; при асимметричном делении одна клетка сохраняет стволовое состояние, другая вступает в специализацию.
Опухолевая клетка накапливает изменения, позволяющие игнорировать тормозящие сигналы, поддерживать теломеры, избегать апоптоза и делиться при повреждённой ДНК. Это не означает, что любой быстрый митоз — рак: эпителий кишечника и костный мозг делятся интенсивно, но контролируемо. Митотический индекс — доля клеток в митозе — зависит от длительности M-фазы и частоты входа в деление. Яд, задерживающий клетки в метафазе, увеличит митотический индекс, хотя образование дочерних клеток уменьшится.
На что обратить внимание в ЕГЭ
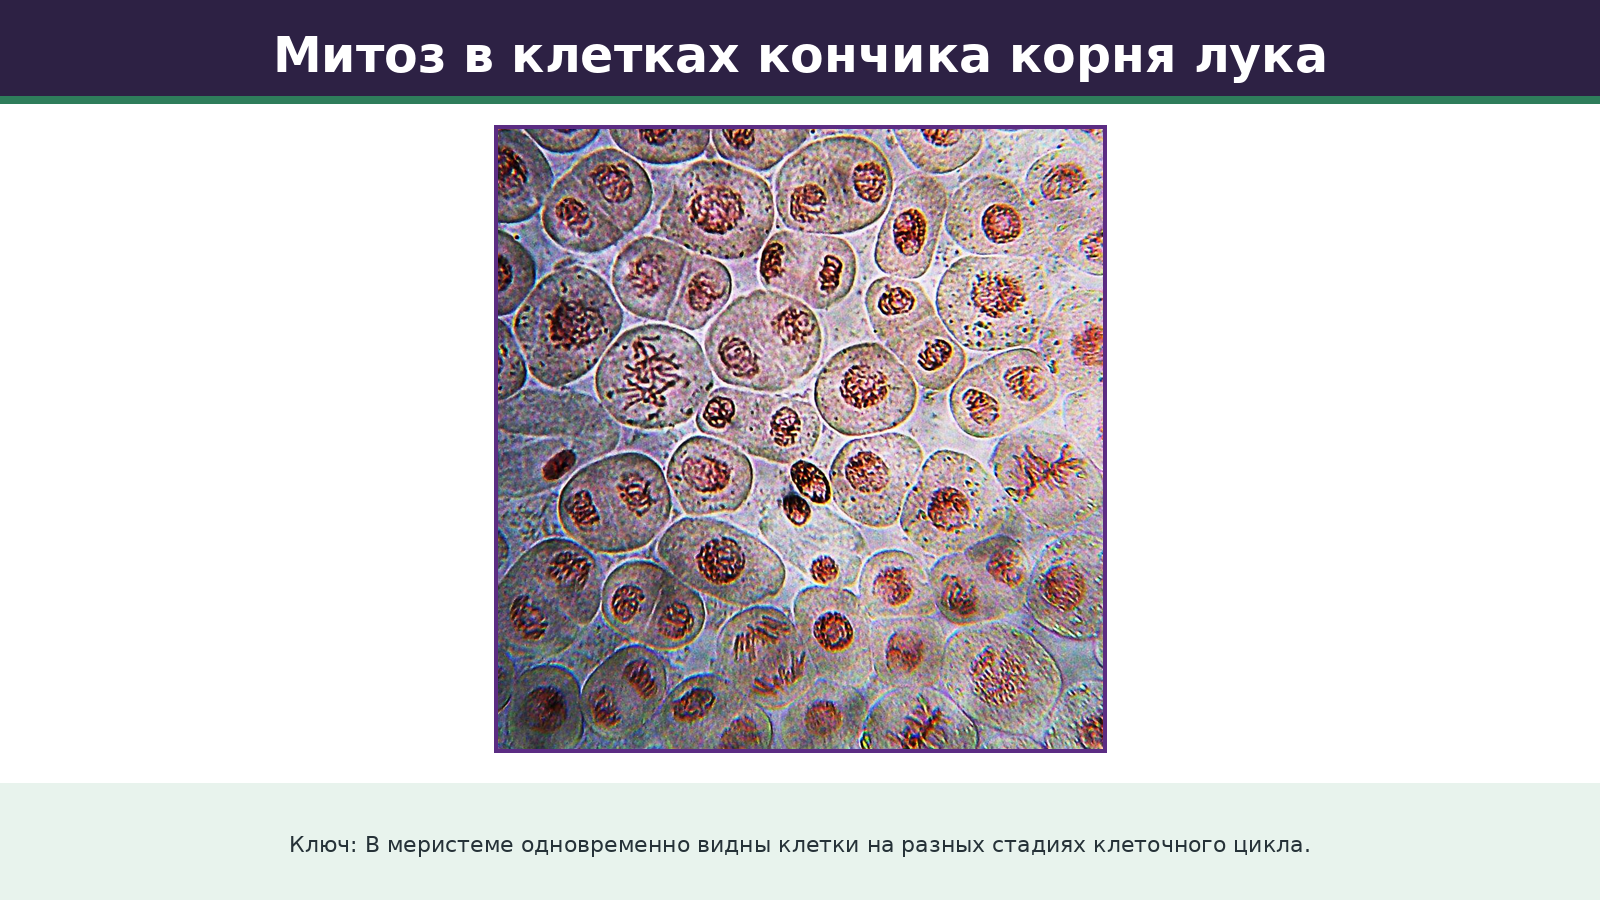
Эксперимент с корешком лука требует фиксировать и окрашивать меристему, выбирать случайные поля зрения и считать все стадии. В учебной модели долю клеток на стадии используют для приближённой оценки её длительности. Для этого предполагают асинхронность и стационарность популяции; в растущих культурах возрастное распределение клеток может вносить смещение. Нельзя считать, что самая часто наблюдаемая стадия «самая важная»: она лишь длится дольше или клетки в ней накапливаются из-за воздействия.
05. Мейоз I: синапсис, кроссинговер и редукция
80+
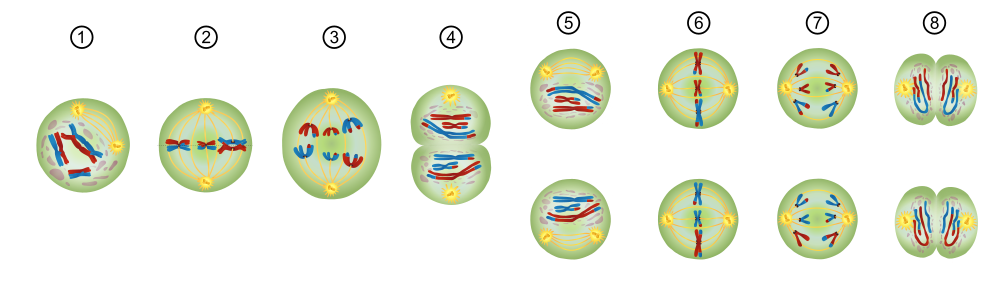
Мейозу предшествует одна репликация ДНК, после которой клетка имеет 2n4c. В профазе I гомологичные двуххроматидные хромосомы сближаются и соединяются синаптонемным комплексом, образуя биваленты, или тетрады. Между несестринскими хроматидами происходят разрывы и взаимный обмен соответствующими участками — кроссинговер. Видимые места контакта называют хиазмами. Профаза I длительна и включает лептотену, зиготену, пахитену, диплотену и диакинез.
В метафазе I биваленты располагаются на экваторе; ориентация каждой пары относительно полюсов случайна и независима от других пар. В анафазе I расходятся гомологичные хромосомы, а сестринские центромеры сохраняют связь. Поэтому деление редукционное: каждая дочерняя клетка получает по одному гомологу каждой пары и становится n2c. Между мейозом I и II нет S-периода, иначе редукция была бы компенсирована новым удвоением.
На что обратить внимание в ЕГЭ
Главное отличие анафазы I от анафазы митоза — расходящиеся единицы. В анафазе I движутся двуххроматидные гомологи; в митозе — сестринские хроматиды. На схеме считайте центромеры и определяйте, образованы ли пары гомологов. Кроссинговер не происходит «между любыми хромосомами»: нормальный обмен идёт между гомологичными участками несестринских хроматид.
06. Мейоз II и генетический результат
80+
Мейоз II по механике похож на митоз гаплоидной клетки. Хромосомы вновь конденсируются и соединяются с веретеном, в метафазе II располагаются по одной на экваторе. В анафазе II центромерный когезин расщепляется и сестринские хроматиды расходятся. После телофазы и цитокинеза из одной исходной диплоидной клетки обычно возникают четыре гаплоидные клетки n1c. Продукты мейоза могут различаться по сочетаниям аллелей из-за кроссинговера и независимого расхождения гомологов. Случайное оплодотворение создаёт дополнительное разнообразие уже на следующем этапе полового размножения, а не внутри самого мейоза.
Независимое расхождение создаёт 2ⁿ комбинаций хромосом в гаметах, где n — число гаплоидного набора, ещё без учёта кроссинговера. У человека это более восьми миллионов сочетаний. Кроссинговер создаёт новые комбинации аллелей внутри одной хромосомы, поэтому реальное разнообразие гораздо выше. Мейоз одновременно сохраняет постоянство числа хромосом вида после оплодотворения и создаёт материал для естественного отбора.
На что обратить внимание в ЕГЭ
В таблицах n/c фиксируйте состояние для одной клетки, а не суммарно на все продукты. После мейоза I каждая клетка n2c, после мейоза II — n1c. Если спрашивают число молекул ДНК, оно равно числу хроматид. Если исходная клетка имеет 2n=6, после S-периода в ней 6 хромосом и 12 молекул ДНК; в каждой клетке после мейоза I — 3 хромосомы и 6 молекул ДНК; в гамете — 3 и 3.
07. Кроссинговер и генетические карты
90+
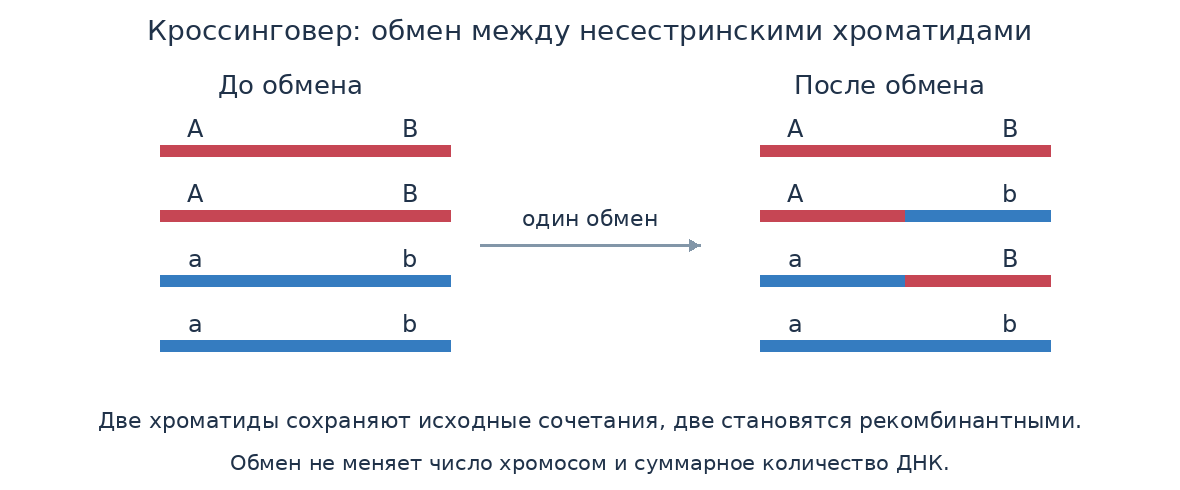
Кроссинговер начинается с программируемого двуцепочечного разрыва ДНК и восстановления по гомологичной хромосоме. Обмен должен быть взаимным и происходить между соответствующими локусами, иначе возможны делеции и дупликации. Из четырёх хроматид бивалента в одном единичном обмене обычно участвуют две; две остаются родительскими, две становятся рекомбинантными. Хиазмы также механически удерживают гомологи до анафазы I и помогают их правильному расхождению.
Чем дальше два гена расположены друг от друга в одной хромосоме, тем выше вероятность кроссинговера между ними. Частота рекомбинантных гамет используется как оценка расстояния: 1% рекомбинаций соответствует примерно 1 морганиде, или сантиморгану. Однако наблюдаемая частота не превышает 50%: при больших расстояниях множественные обмены маскируют часть рекомбинаций, и гены выглядят наследующимися независимо.
На что обратить внимание в ЕГЭ
Для определения рекомбинантных классов сравните комбинации аллелей с родительскими. Самые многочисленные классы в анализирующем скрещивании обычно родительские, редкие — рекомбинантные. Частота кроссинговера = число рекомбинантных потомков / общее число × 100%. Нельзя умножать эту величину на два: каждый рекомбинантный потомок уже отражает рекомбинантную гамету исследуемой особи.
08. Нерасхождение и хромосомные нарушения
90+
Если в анафазе I гомологичные хромосомы не расходятся, после завершения мейоза образуются две гаметы n+1 и две n−1: нормальных гамет нет. Если ошибка происходит в анафазе II, из четырёх продуктов обычно получаются одна гамета n+1, одна n−1 и две нормальные n. После слияния с нормальной гаметой возникают трисомия 2n+1 или моносомия 2n−1. Причиной может быть нарушение кинетохорных прикреплений, когезии или контрольной точки веретена.
Риск некоторых анеуплоидий возрастает с возрастом матери, потому что ооциты человека десятилетиями остаются остановленными в профазе I, а белки когезии постепенно ослабевают. Большинство анеуплоидных эмбрионов не развивается; совместимы с жизнью лишь некоторые варианты, например трисомия 21. Мозаицизм возникает, если нерасхождение происходит уже в митозе после образования зиготы: разные клоны клеток организма имеют разные кариотипы.
На что обратить внимание в ЕГЭ
По распределению гамет можно определить этап ошибки. Четыре аномальные гаметы указывают на мейоз I; две нормальные и две аномальные — на мейоз II. Но для различения по молекулярным маркерам учитывают, какие гомологи или сестринские копии попали вместе. Не называйте анеуплоидию «мутацией одного гена»: это геномная мутация, меняющая число отдельных хромосом.
Разбор 90+: где произошло нерасхождение?
У вида 2n = 8 после мейоза получены четыре гаметы: 5, 5, 3 и 3 хромосомы. Одна пара гомологов не разошлась в мейозе I: обе клетки после первого деления получили неправильное число гомологов, поэтому нормальных гамет нет.
Если не разошлись сестринские хроматиды в одной клетке мейоза II, результат иной: 5, 3, 4 и 4. Две гаметы остаются нормальными. Вывод предполагает единственное нарушение и нормальное поведение остальных хромосом.
09. Сперматогенез и оогенез
80+
Гаметогенез включает размножение исходных клеток митозом, рост и созревание мейозом. Один сперматоцит I порядка после мейоза обычно даёт четыре сперматиды, которые превращаются в сперматозоиды: ядро конденсируется, формируются акросома и жгутик, удаляется лишняя цитоплазма, митохондрии концентрируются в средней части. Деления цитоплазмы примерно равны, потому что все четыре гаметы должны быть подвижными и функциональными.
При оогенезе цитокинез неравный: почти вся цитоплазма достаётся одной клетке, а небольшие полярные тельца получают лишние наборы хромосом. У человека ооцит I порядка начинает мейоз до рождения и останавливается в профазе I. Перед овуляцией завершается мейоз I; ооцит II порядка задерживается в метафазе II и завершает деление только после проникновения сперматозоида. Результат — одна крупная яйцеклетка и полярные тельца.
На что обратить внимание в ЕГЭ
Сравнивая процессы, укажите не только число продуктов, но и время, ритм, размер клеток и функциональный смысл. Сперматогенез после полового созревания идёт непрерывными волнами, оогенез связан с ограниченным запасом клеток и длительными остановками. Мейоз создаёт гаплоидность, а последующая дифференцировка формирует специализированную гамету; не следует называть спермиогенез дополнительным делением.
10. Апоптоз, некроз и клеточное старение
80+
Апоптоз — регулируемая программа удаления клетки. Внутренний путь реагирует на тяжёлое повреждение ДНК, стресс ЭПС или нарушение митохондрий; внешний запускают рецепторы смерти. Оба активируют каспазы — протеазы, которые последовательно расщепляют клеточные белки. Клетка уменьшается, хроматин конденсируется, ДНК фрагментируется, мембрана образует выпячивания и апоптотические тельца. Фагоциты быстро их поглощают, поэтому содержимое почти не выходит и воспаление обычно минимально.
При некрозе тяжёлое повреждение вызывает потерю ионного баланса, набухание органоидов и клетки, разрыв мембраны и выход молекул, активирующих воспаление. Это не просто «случайная версия апоптоза», хотя существуют регулируемые некротические пути. Клеточное старение — стойкая остановка цикла: клетка остаётся метаболически активной и выделяет сигнальные вещества. Оно препятствует делению повреждённых клеток, но накопление стареющих клеток может поддерживать хроническое воспаление.
На что обратить внимание в ЕГЭ
В эмбриогенезе апоптоз формирует структуры, например удаляет ткань между пальцами; в иммунной системе уничтожает опасные или лишние лимфоциты. Если каспазы заблокированы, повреждённые клетки могут выживать, повышая риск опухоли; если апоптоз чрезмерен, теряются функциональные клетки. На рисунке различайте сжатие и фрагментацию при сохранённой мембране от набухания и лизиса при некрозе.
11. Универсальный алгоритм расчётов n и c
80+
Для расчёта сначала определяют исходную плоидность, затем спрашивают, была ли репликация и какие структуры расходятся. n показывает число наборов гомологичных хромосом, c — количество ДНК относительно гаплоидного нереплицированного набора. Репликация меняет c, но не n. Расхождение гомологов в мейозе I уменьшает n в каждой клетке, но хромосомы остаются двуххроматидными. Расхождение сестринских хроматид в митозе или мейозе II меняет число центромер внутри ещё не разделившейся клетки, а после цитокинеза распределяет ДНК между продуктами.
У вида 2n=10 клетка G₁ имеет 10 хромосом и 10 молекул ДНК; после S — 10 и 20. В метафазе митоза показатели те же. В анафазе одной клетки — 20 дочерних хромосом и 20 молекул ДНК; в каждом продукте — 10 и 10. После мейоза I каждая клетка имеет 5 хромосом и 10 молекул ДНК; после II гамета — 5 и 5. Эти конкретные числа проверяют понимание лучше заученной таблицы.
На что обратить внимание в ЕГЭ
Если дан полиплоид или анеуплоид, нельзя автоматически писать 2n. Считайте фактические центромеры и молекулы в указанной клетке. В сперматогенезе вопрос может просить суммарное число ДНК во всех четырёх продуктах: оно отличается от показателя одной гаметы, но равно распределённому исходному количеству при отсутствии потерь. Всегда подписывайте, для одной клетки или всей группы сделан расчёт.
| Стадия | Хромосомы | ДНК |
|---|---|---|
| G₁ диплоидной клетки | 2n | 2c |
| После S, профаза и метафаза митоза | 2n | 4c |
| Анафаза митоза: вся клетка | 4n | 4c |
| После митоза: одна дочерняя клетка | 2n | 2c |
| Метафаза I и анафаза I: вся клетка | 2n | 4c |
| После мейоза I, метафаза II: одна клетка | n | 2c |
| Анафаза II: одна делящаяся клетка | 2n | 2c |
| После мейоза II: один продукт | n | c |
Расчёт на одну клетку
| Состояние при 2n = 6 | Хромосомы | Молекулы ДНК |
|---|---|---|
| G₁ | 6 | 6 |
| Метафаза митоза | 6 | 12 |
| Анафаза митоза, вся клетка | 12 | 12 |
| После мейоза I, одна клетка | 3 | 6 |
| После мейоза II, одна клетка | 3 | 3 |
12. Микроскопия делящихся клеток
80+
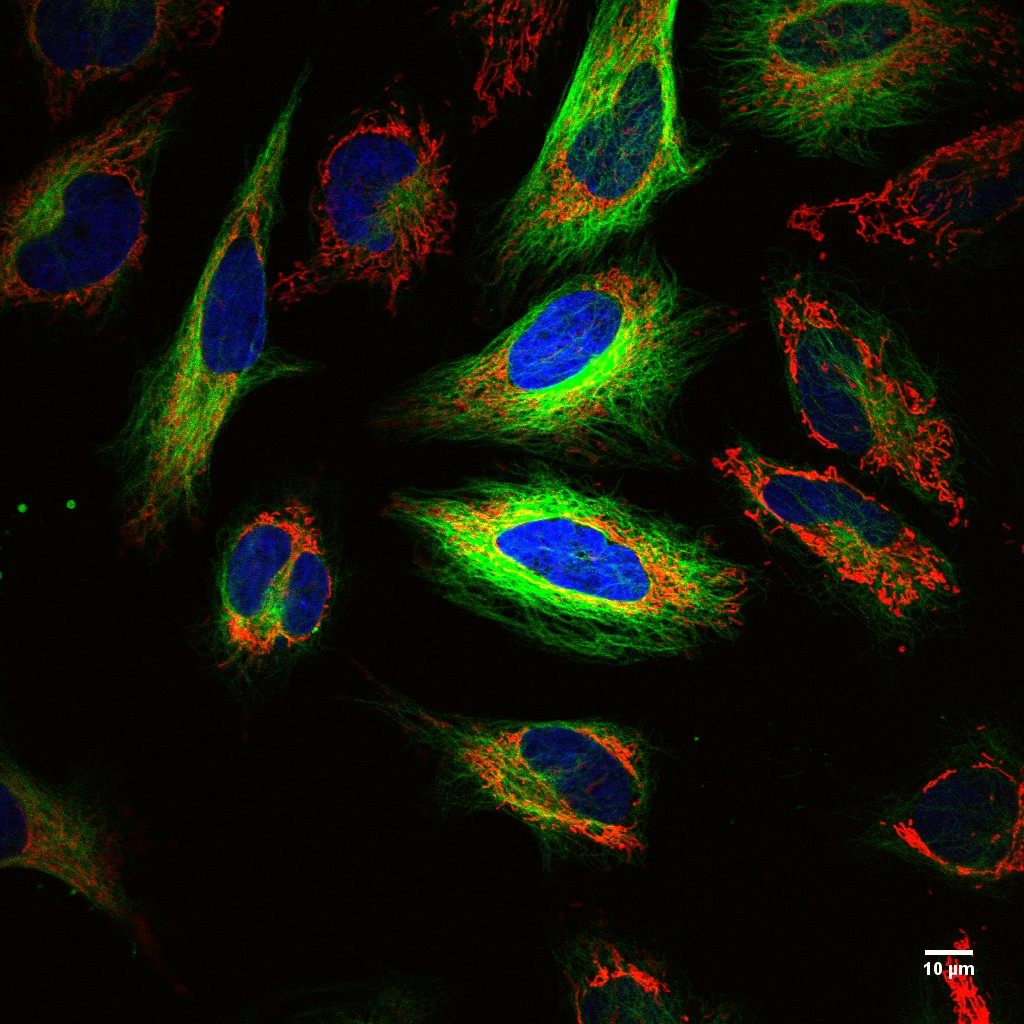
Для наблюдения митоза выбирают ткань с активной пролиферацией, например меристему корня. Её фиксируют, размягчают, окрашивают ДНК и расплющивают, чтобы клетки лежали в одном слое. Интерфазные ядра многочисленны и имеют диффузный хроматин; митотические клетки узнают по конденсированным хромосомам. Современная флуоресцентная микроскопия отдельно метит ДНК, микротрубочки и центромеры, позволяя видеть прикрепления и движение во времени.
Митотический индекс рассчитывают как число клеток в митозе, делённое на общее число учтённых клеток. Индекс повышается, если больше клеток входит в митоз, но также если они дольше не могут его закончить. Поэтому временной ряд и распределение по стадиям необходимы для механистического вывода. Если растёт только доля метафаз, вероятен блок веретена; если пропорционально растут все стадии и число клеток, цикл действительно ускорился.
На что обратить внимание в ЕГЭ
Изображение должно иметь масштаб и случайный способ выбора полей. Выбор только «красивых» участков завышает индекс. Слепой подсчёт уменьшает субъективность, несколько независимых корешков дают биологические повторности. В ответе на вопрос по микрофотографии сначала очертите одну клетку и найдите полюса/экватор; только затем называйте стадию.
13. Клеточный цикл, старение и опухолевая трансформация
90+
Нормальная клетка объединяет ростовые сигналы с состоянием генома. Белок p53 стабилизируется при повреждении ДНК, включает ингибитор циклин-зависимых киназ, даёт время на репарацию, а при тяжёлом повреждении запускает апоптоз. Белок Rb удерживает фактор транскрипции, необходимый для S-фазы; фосфорилирование Rb циклин-зависимыми киназами освобождает его. Мутации в этих узлах позволяют клетке реплицировать повреждённую ДНК.
Онкоген возникает при активирующем изменении гена, стимулирующего рост; достаточно одной активной копии на клеточном уровне. Ген-супрессор опухоли обычно теряет функцию, и часто требуется повреждение обеих копий. Опухоль развивается ступенчато: клон получает преимущества деления, избегает гибели, поддерживает теломеры, стимулирует сосуды и приобретает способность к инвазии. Это эволюция клеток внутри организма под действием отбора.
На что обратить внимание в ЕГЭ
Препарат, повреждающий ДНК, может уничтожать опухоль через апоптоз, но также создаёт отбор устойчивых клонов. Препарат веретена действует на все быстро делящиеся ткани. Поэтому по побочным эффектам можно предсказать уязвимые нормальные системы. На ЕГЭ не требуется перечислять названия генов, но причинная логика «контрольная точка → сохранение мутации → клональное размножение» должна быть точной.
14. Мейоз как источник разнообразия и объект отбора
90+
Комбинативная изменчивость складывается из трёх масштабов. Независимая ориентация целых гомологов создаёт комбинации хромосом, кроссинговер перестраивает сочетания аллелей внутри хромосомы, случайное оплодотворение объединяет две независимо образованные гаметы. Мутации создают новые аллели, а мейоз их перераспределяет. Половое размножение не гарантирует «лучшее» потомство, но создаёт вариацию, на которой действует отбор.
Рекомбинация может разрывать удачные сочетания, однако помогает отделить полезный аллель от вредного соседнего и объединять полезные варианты из разных линий. Частота обменов регулируется и неодинакова вдоль хромосом; около центромер она часто ниже. Хиазмы нужны не только разнообразию, но и правильному расхождению, поэтому полное отсутствие обменов может повышать анеуплоидию.
На что обратить внимание в ЕГЭ
В популяционной задаче отделяйте индивидуальный механизм от эволюционного следствия. Кроссинговер происходит у конкретной клетки в профазе I; изменение частот аллелей происходит между поколениями популяции. Сам мейоз не выбирает полезные комбинации. Если условия меняются, отбор меняет вклад разных генотипов в следующее поколение.