

Световые реакции, цикл Кальвина и автотрофное питание.
Содержание урока
- Фотосинтез как преобразование энергии
- Хлоропласт и принцип компартментализации
- Пигменты, фотосистемы и спектр действия
- Линейный поток электронов и фотолиз воды
- Хемиосмос и фотофосфорилирование
- Цикл Кальвина: фиксация, восстановление, регенерация
- Фотореспирация и работа RuBisCO
- C₃-, C₄- и CAM-стратегии
- Лимитирующие факторы и продуктивность
- Хемосинтез и роль хемоавтотрофов
- Как измеряют фотосинтез
- Лист как система доставки ресурсов
- Фотоакклимация и защита от избытка света
- Интеграционная модель углеродного и энергетического баланса
- Углубление: энергетический баланс фотосинтеза
- C₃-, C₄- и CAM-стратегии как решение одной проблемы
- Как читать эксперимент по фотосинтезу
- Типичные ошибки в ответах ЕГЭ
01. Фотосинтез как преобразование энергии
Фотосинтез — не просто образование кислорода и не буквальное превращение углекислого газа в кислород. Это совокупность реакций, в которых энергия света сначала переводится в химическую форму АТФ и НАДФ·Н, а затем расходуется на восстановление углерода CO₂ до уровня углеводов. Источник выделяемого O₂ — вода, что доказано опытами с изотопом ¹⁸O. Уравнение 6CO₂ + 6H₂O → C₆H₁₂O₆ + 6O₂ удобно для баланса веществ, но оно скрывает множество стадий и не показывает промежуточные переносчики. В растительной клетке светозависимые реакции идут на тилакоидной мембране, а реакции цикла Кальвина — в строме хлоропласта.
Главная причинная цепь такова: фотон возбуждает электрон пигмента → электрон проходит по переносчикам → энергия переноса используется для накопления H⁺ в люмене → АТФ-синтаза синтезирует АТФ → НАДФ⁺ получает электроны и протоны → АТФ и НАДФ·Н обеспечивают восстановление 3-фосфоглицерата в цикле Кальвина. Световая и углерод-фиксирующая части разделены пространственно, но функционально неразрывны. При остановке переноса электронов быстро исчерпываются АТФ и НАДФ·Н, поэтому фиксация CO₂ замедляется даже при исправном ферменте RuBisCO.
02. Хлоропласт и принцип компартментализации
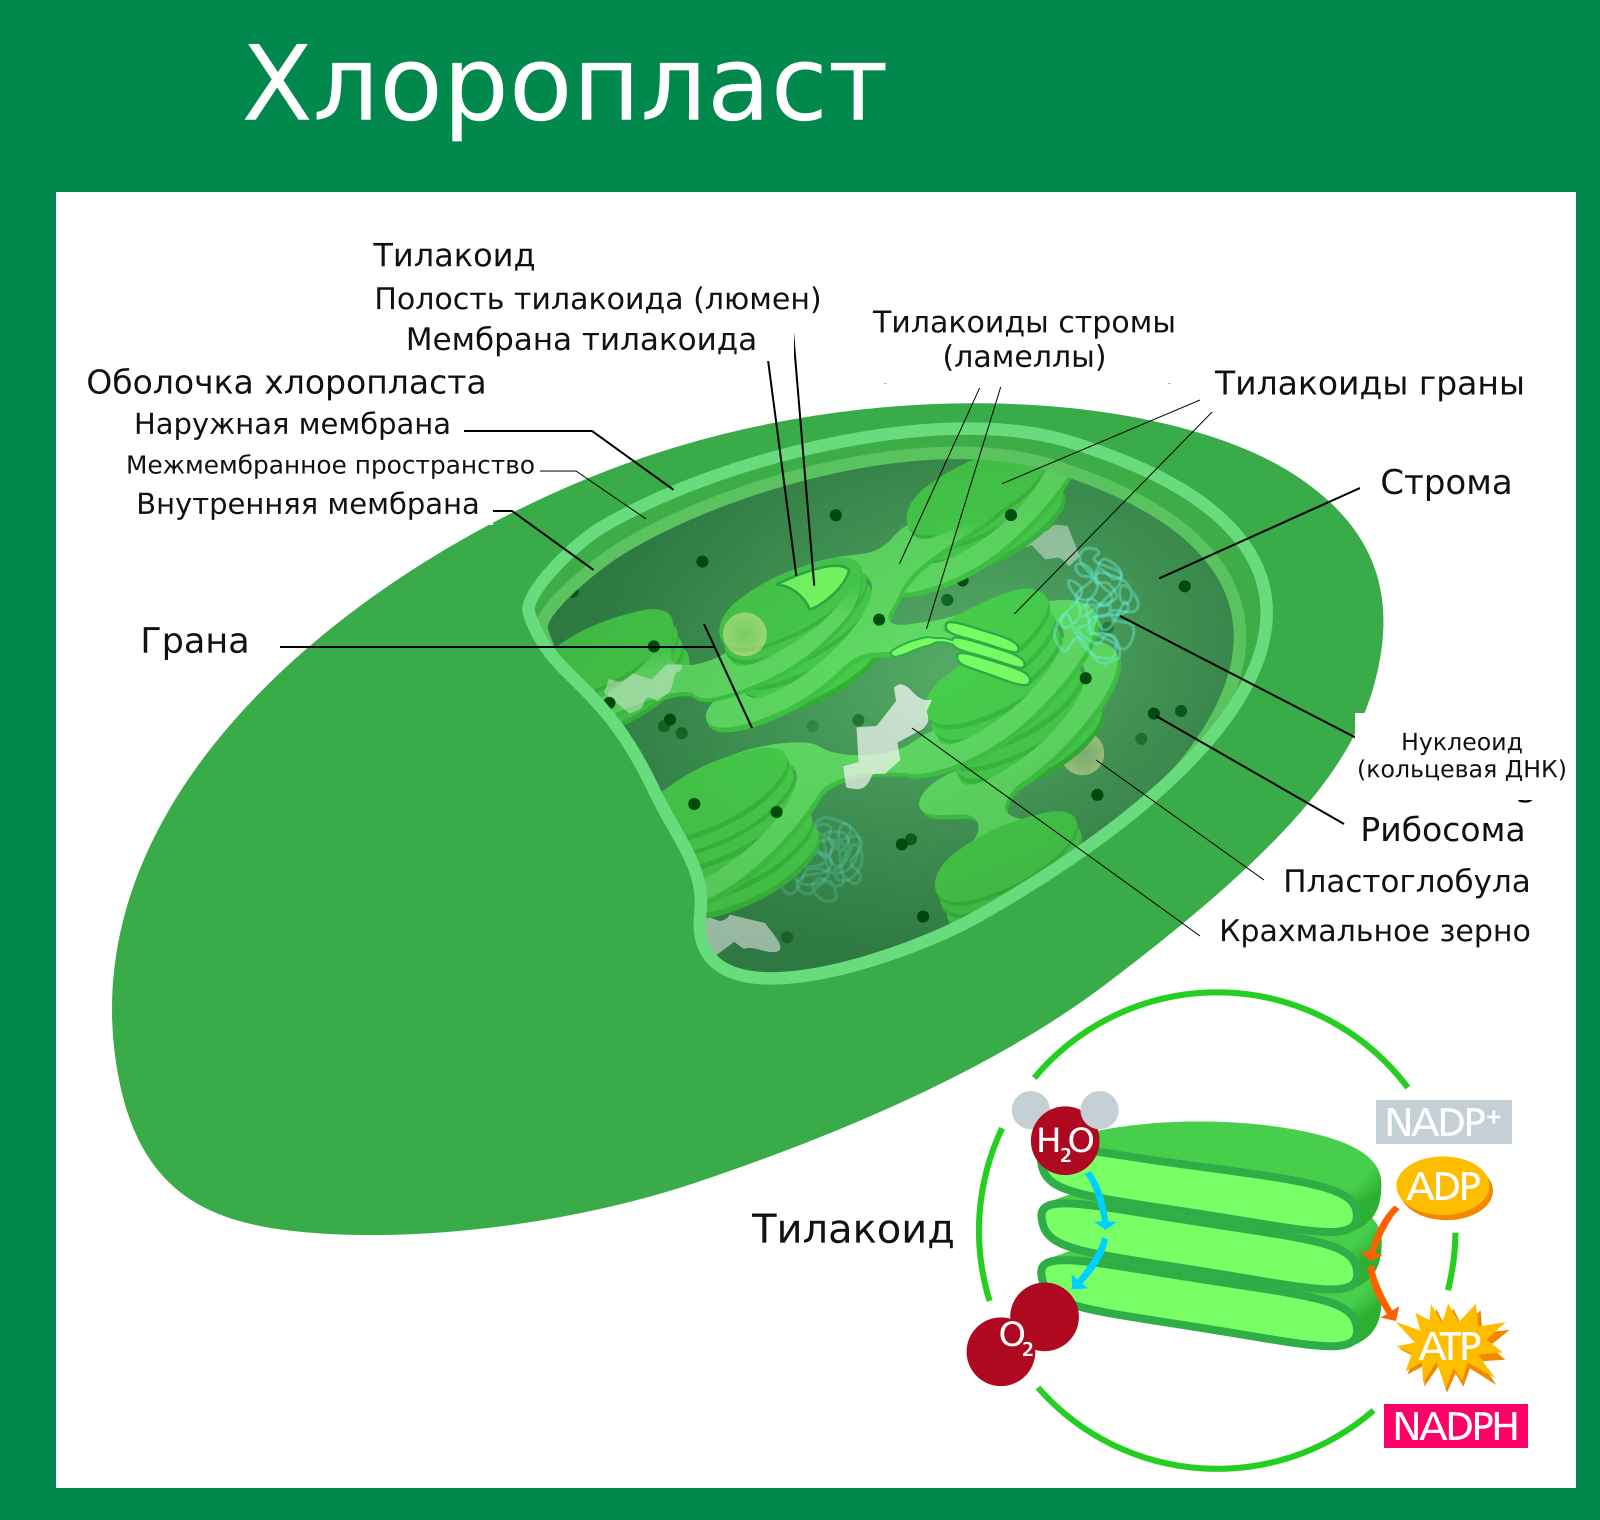
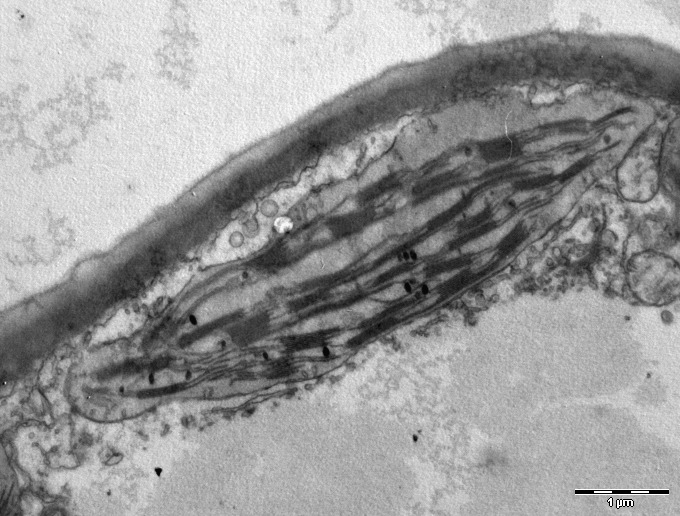
Хлоропласт окружён двумя мембранами. Внутри находится строма с ферментами цикла Кальвина, кольцевой ДНК, рибосомами 70S, включениями крахмала и липидными каплями. Третья мембранная система образована тилакоидами. Их внутреннее пространство называют люменом; тилакоиды собраны в граны и соединены стромальными ламеллами. Хлорофиллы, каротиноиды, фотосистемы, переносчики электронов и АТФ-синтаза встроены именно в тилакоидную мембрану. Большая площадь этой мембраны увеличивает число одновременно работающих световых комплексов, а замкнутый люмен позволяет создать разность концентраций протонов.
Связь строения с функцией нужно объяснять через барьерные свойства мембраны. Если бы H⁺ свободно проходили через липидный слой, протонный градиент не возникал бы и фотофосфорилирование стало бы невозможным. Ориентация белков тоже принципиальна: каталитическая головка хлоропластной АТФ-синтазы обращена в строму, поэтому АТФ образуется со стороны стромы и сразу доступен ферментам фиксации углерода. Граны обогащены фотосистемой II, а стромальные ламеллы — фотосистемой I; такое распределение помогает согласовать два потока возбуждённых электронов.
03. Пигменты, фотосистемы и спектр действия
Хлорофилл a является главным пигментом реакционных центров, а хлорофилл b и каротиноиды расширяют диапазон поглощаемого света и передают энергию возбуждения на хлорофилл a. Молекулы пигментов объединены с белками в светособирающие комплексы. Фотосистема включает антенну и реакционный центр. В фотосистеме II особая пара хлорофиллов обозначается P680, в фотосистеме I — P700; числа приблизительно соответствуют длинам волн максимального поглощения. Спектр поглощения показывает, какие длины волн поглощает конкретный пигмент, а спектр действия — насколько эффективно разные длины волн запускают фотосинтез целого объекта.
Зелёный свет слабее поглощается хлорофиллами и в большей степени отражается или проходит сквозь лист, поэтому лист кажется зелёным. Однако утверждение «зелёный свет совсем не используется» неверно: вспомогательные пигменты и более глубокие слои листа могут его поглощать. Каротиноиды не только собирают свет, но и гасят избыток возбуждения, защищая мембраны от активных форм кислорода. При слишком сильном освещении фотоповреждение усиливается; растение включает нефотохимическое тушение и рассеивает часть энергии как тепло.
04. Линейный поток электронов и фотолиз воды
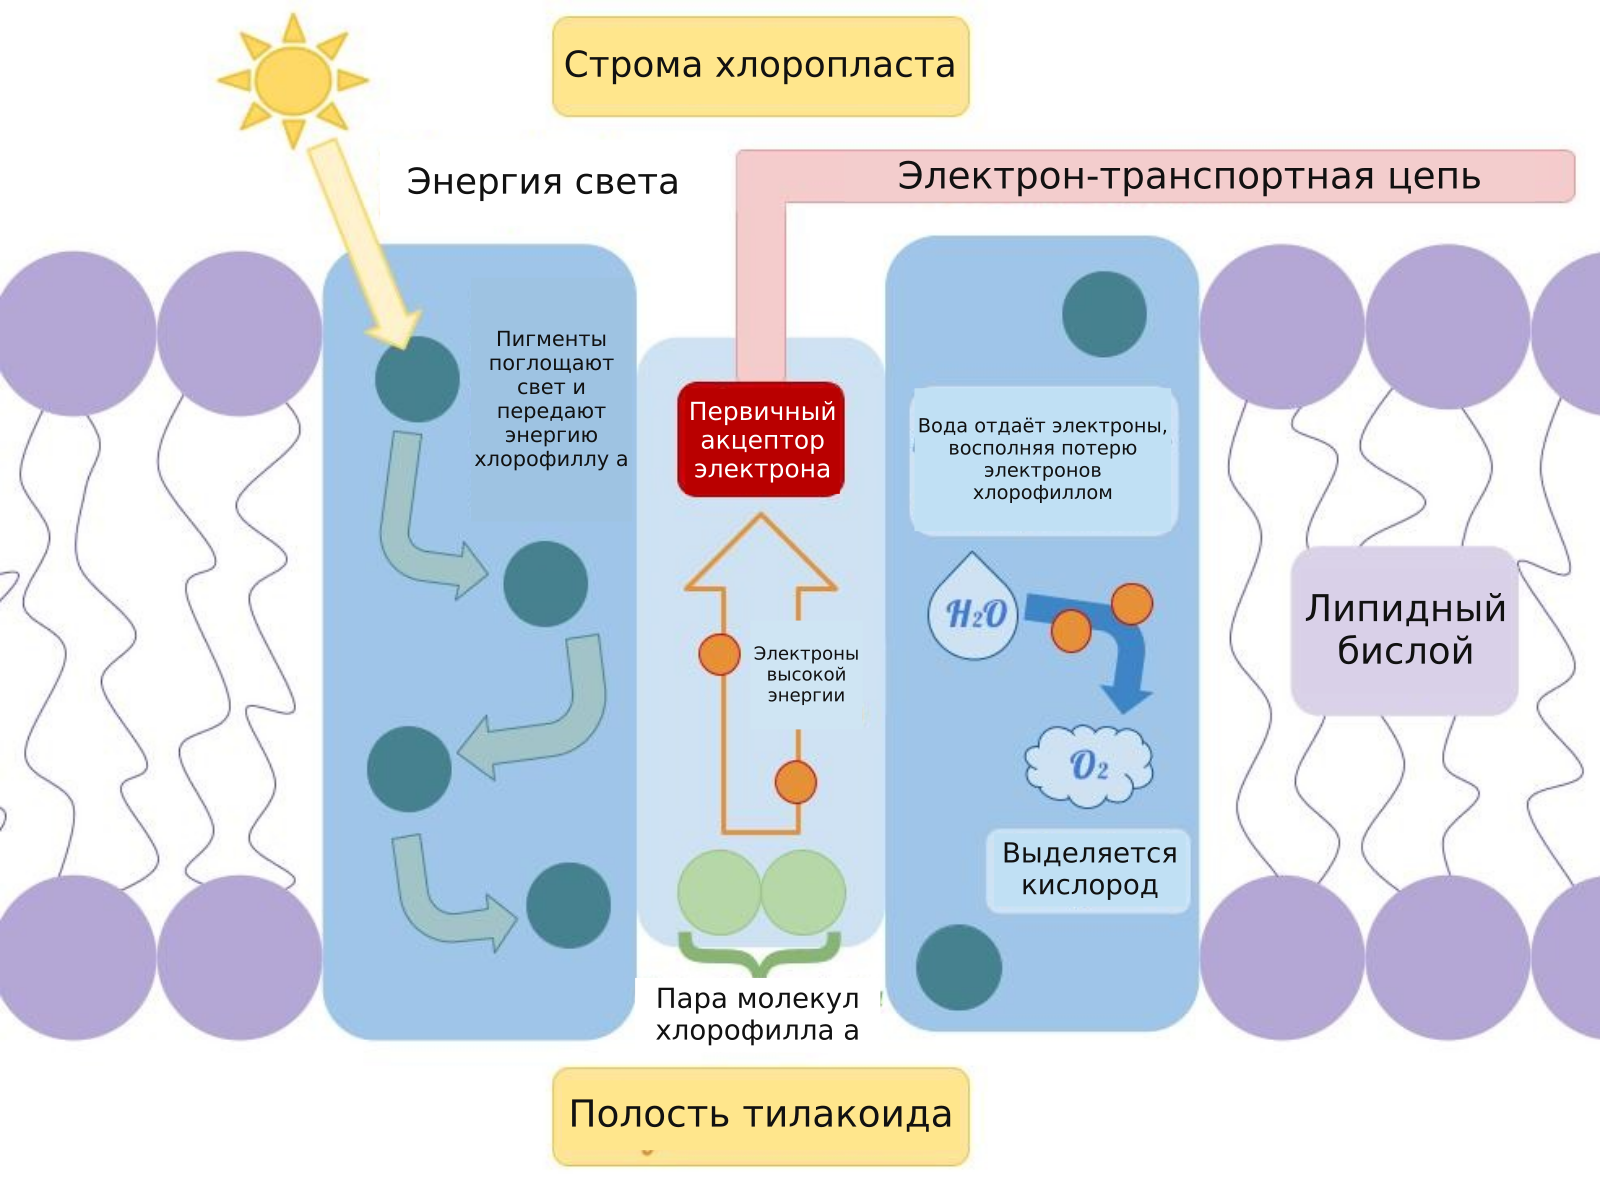
Линейный поток начинается в фотосистеме II. Поглощённая энергия переводит электрон P680 на более высокий энергетический уровень; первичный акцептор забирает электрон. Окисленный P680⁺ — сильный окислитель, поэтому кислород-выделяющий комплекс восполняет электроны, расщепляя воду: 2H₂O → O₂ + 4H⁺ + 4e⁻. Кислород выходит как побочный продукт, протоны остаются в люмене, а электроны возвращают реакционный центр в восстановленное состояние. Затем электроны идут через пластохинон, цитохромный комплекс b₆f и пластоцианин к фотосистеме I.
Цитохромный комплекс использует энергию электронов для переноса дополнительных протонов из стромы в люмен. В фотосистеме I электрон снова возбуждается светом и через ферредоксин поступает на НАДФ⁺-редуктазу. На стромальной стороне НАДФ⁺ принимает два электрона и протон, образуя НАДФ·Н. Итог линейного потока — O₂, протонный градиент, АТФ и НАДФ·Н. Две фотосистемы нужны потому, что одного возбуждения недостаточно одновременно отнять электрон у воды и восстановить НАДФ⁺.
05. Хемиосмос и фотофосфорилирование
Протон-движущая сила включает химическую составляющую — разность концентраций H⁺ — и электрическую составляющую — разность зарядов. В люмене протоны накапливаются тремя путями: высвобождаются при фотолизе воды, переносятся цитохромным комплексом из стромы и косвенно сохраняются потому, что восстановление НАДФ⁺ потребляет H⁺ в строме. Липидный бислой почти непроницаем для ионов, поэтому основной регулируемый путь обратно в строму проходит через канал АТФ-синтазы. Поток H⁺ вращает части ферментного комплекса и вызывает конформационные изменения каталитических центров, где АДФ и неорганический фосфат превращаются в АТФ.
Если мембрану обработать разобщителем, который переносит протоны через бислой, транспорт электронов может некоторое время продолжаться, но градиент рассеивается и синтез АТФ падает. Если заблокировать АТФ-синтазу, H⁺ перестают возвращаться в строму, градиент становится чрезмерным и тормозит дальнейший перенос электронов. Эти разные воздействия дают сходное конечное следствие — дефицит АТФ, но противоположно влияют на величину градиента, поэтому ответ должен различать механизм.
06. Цикл Кальвина: фиксация, восстановление, регенерация
Цикл Кальвина начинается с присоединения CO₂ к рибулозо-1,5-бисфосфату, или RuBP. Реакцию катализирует RuBisCO. Нестойкий шестиуглеродный продукт распадается на две молекулы 3-фосфоглицерата. На стадии восстановления АТФ фосфорилирует эти соединения, а НАДФ·Н отдаёт электроны; образуется глицеральдегид-3-фосфат, или триозофосфат. Часть триозофосфата покидает цикл и используется для синтеза углеводов, а большая часть при затрате АТФ перестраивается обратно в RuBP. Без регенерации акцептора новая фиксация CO₂ невозможна.
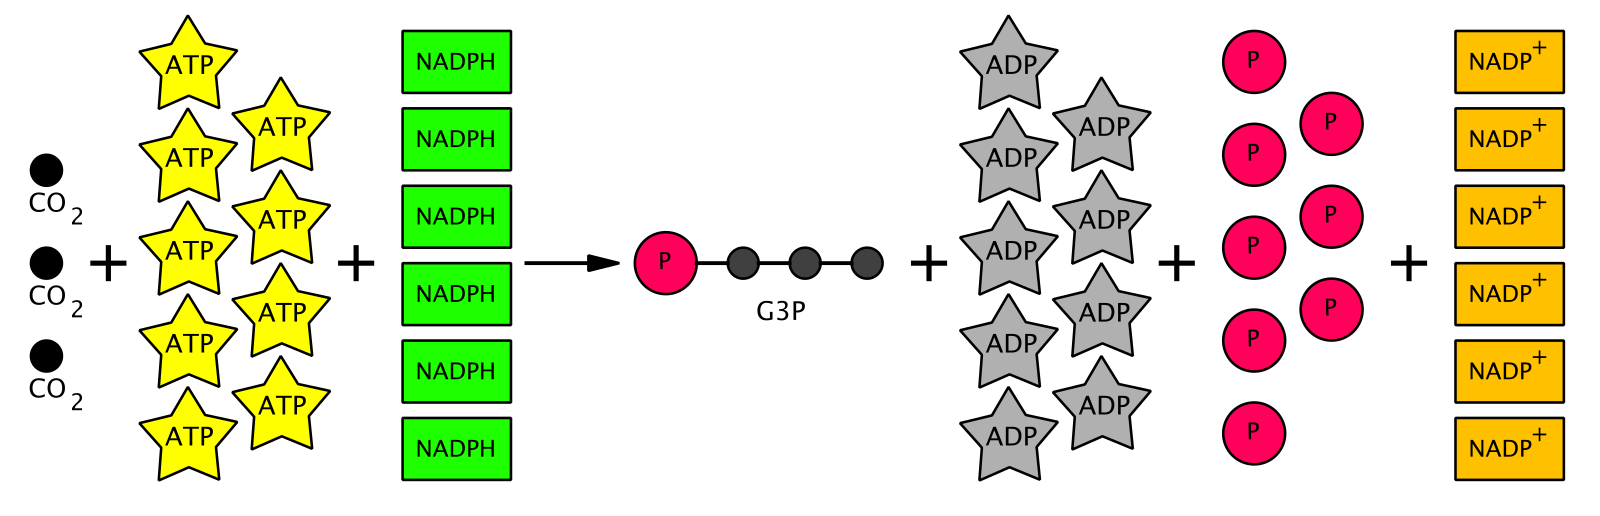
Для фиксации трёх CO₂ требуется три RuBP; образуется шесть триозофосфатов, но чистый выход составляет только одну молекулу, потому что пять идут на регенерацию. Затрачиваются 9 АТФ и 6 НАДФ·Н. Для условной гексозы нужны шесть CO₂, 18 АТФ и 12 НАДФ·Н. Эти числа объясняют, почему циклический перенос электронов может быть полезен: линейный поток не всегда создаёт достаточно АТФ относительно НАДФ·Н.
| Чистый результат | CO₂ | АТФ | НАДФ·Н |
|---|---|---|---|
1 триозофосфат | 3 | 9 | 6 |
Эквивалент 1 гексозы | 6 | 18 | 12 |
07. Фотореспирация и работа RuBisCO
RuBisCO может присоединять к RuBP не только CO₂, но и O₂. При оксигеназной реакции образуются 3-фосфоглицерат и двухуглеродный фосфогликолат. Его переработка требует совместной работы хлоропласта, пероксисомы и митохондрии, расходует энергию и сопровождается потерей ранее фиксированного углерода в виде CO₂. Этот процесс называют фотореспирацией. Она особенно усиливается при высокой температуре, низкой концентрации CO₂ и закрытых устьицах, когда CO₂ в листе исчерпывается, а O₂ накапливается.
Повышение температуры ухудшает специфичность RuBisCO к CO₂ и одновременно снижает растворимость CO₂ относительно O₂. Засуха вызывает закрывание устьиц, ограничивая поступление CO₂; поэтому даже при ярком свете чистая продуктивность C₃-растения может уменьшиться. Фотореспирация выглядит «расточительной», однако её нельзя описывать только как бесполезный дефект: она участвует в защите фотосистем при избытке света, когда цикл Кальвина ограничен CO₂.
08. C₃-, C₄- и CAM-стратегии
У C₃-растений CO₂ сразу фиксирует RuBisCO в клетках мезофилла, а первым стабильным продуктом становится трёхуглеродное соединение. У C₄-растений фосфоенолпируваткарбоксилаза в мезофилле присоединяет HCO₃⁻ и образует четырёхуглеродные кислоты. Они поступают в клетки обкладки проводящего пучка, декарбоксилируются и создают вокруг RuBisCO высокую концентрацию CO₂. Это пространственное разделение снижает фотореспирацию, но требует дополнительных затрат АТФ. Характерна кранц-анатомия листа.
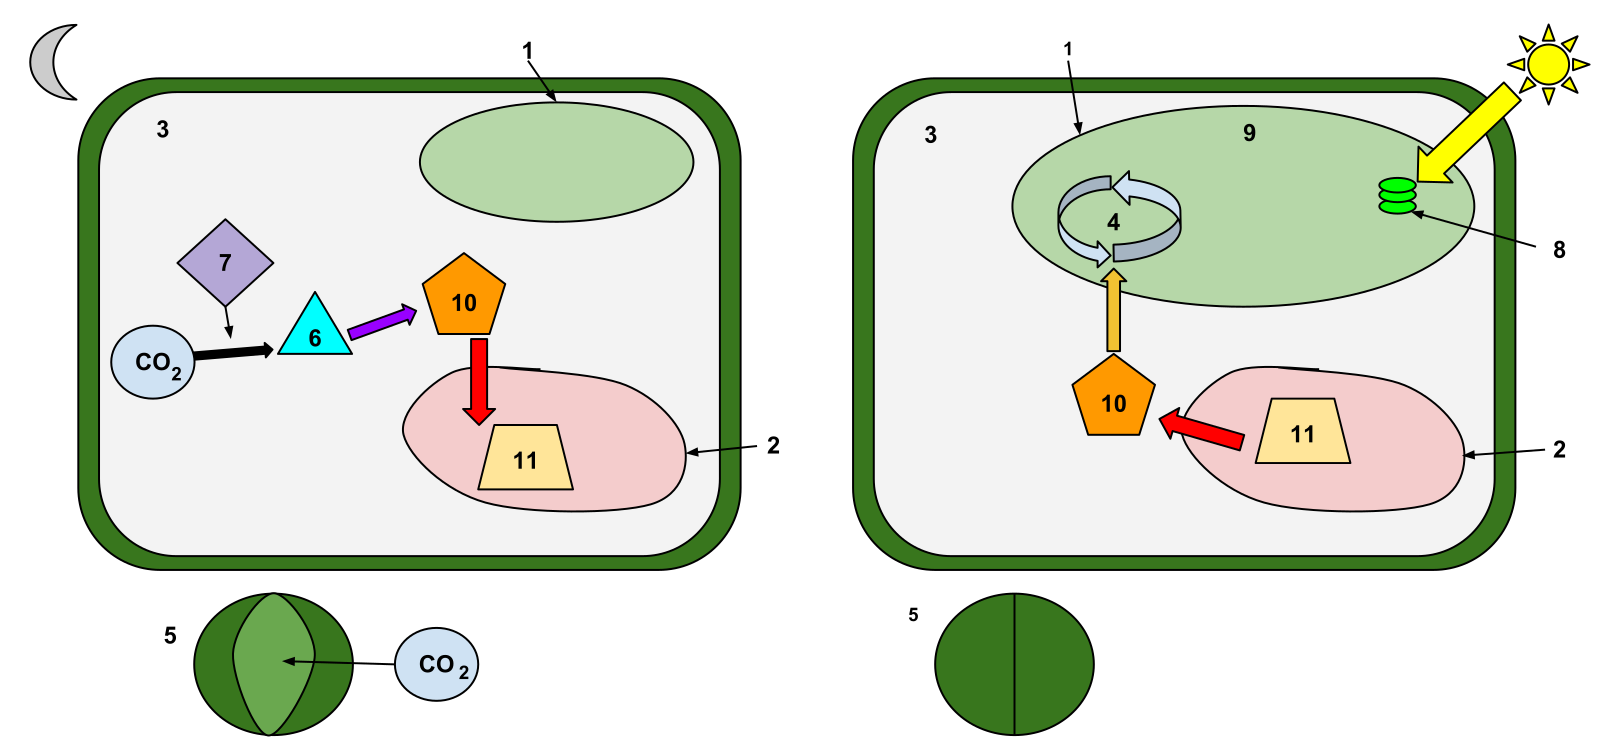
CAM-растения разделяют процессы во времени. Ночью устьица открыты, CO₂ фиксируется PEP-карбоксилазой и запасается в вакуолях как органические кислоты. Днём устьица закрыты, кислоты декарбоксилируются, а высвобождённый CO₂ поступает в цикл Кальвина. Такая стратегия экономит воду, но ограничивает скорость поступления углерода и обычно связана с медленным ростом. C₄ выгоден при высокой освещённости и температуре, CAM — при крайнем дефиците воды, C₃ — в умеренных условиях, где дополнительная энергетическая цена концентрации CO₂ не окупается.
| Признак | C₃ | C₄ | CAM |
|---|---|---|---|
Первичная фиксация | RuBisCO | ФЕП-карбоксилаза | ФЕП-карбоксилаза ночью |
Разделение процессов | Нет специального разделения | Мезофилл и обкладка | Ночь и день |
Первый устойчивый продукт | 3-фосфоглицерат | Оксалоацетат | Оксалоацетат; запас малата |
Устьица | Обычно открыты днём | Обычно открыты днём | Обычно открыты ночью |
09. Лимитирующие факторы и продуктивность
Скорость фотосинтеза зависит от освещённости, спектра света, концентрации CO₂, температуры, обеспеченности водой и минеральными элементами, площади листьев и состояния устьиц. Закон лимитирующего фактора означает: скорость в данный момент ограничивает тот ресурс или процесс, который сильнее всего отклонён от оптимума. При слабом свете добавление CO₂ почти не помогает, потому что не хватает АТФ и НАДФ·Н. После светового насыщения дополнительное освещение не ускоряет процесс; лимитировать начинают CO₂, ферментативная мощность или температура.
Кривая света обычно сначала почти линейна, затем выходит на плато, а при чрезмерной интенсивности может снижаться из-за фотоингибирования. Температурная кривая имеет оптимум: при низких температурах реакции медленны, при высоких нарушаются ферменты, закрываются устьица и усиливаются дыхание с фотореспирацией. Компенсационная точка освещённости — уровень, при котором поглощение CO₂ фотосинтезом равно его выделению дыханием; чистый газообмен равен нулю, хотя оба процесса продолжаются.
10. Хемосинтез и роль хемоавтотрофов
Хемосинтез — образование органических веществ из CO₂ за счёт энергии окисления неорганических соединений. Его выполняют некоторые бактерии и археи. Нитрифицирующие микроорганизмы последовательно окисляют аммиак до нитрита и нитрит до нитрата; сероокисляющие используют H₂S, элементарную серу или тиосульфат; железобактерии окисляют Fe²⁺ до Fe³⁺; водородные бактерии — H₂. Электроны поступают в дыхательную цепь мембраны, возникает протонный градиент, синтезируется АТФ, формируется восстановитель, после чего CO₂ фиксируется в органические молекулы.
Хемосинтез не зависит от света и поэтому поддерживает сообщества в тёмных средах — например, у гидротермальных источников. Однако он не «создаёт энергию»: химическая энергия высвобождается при окислительно-восстановительных реакциях. Экологическое значение особенно заметно в круговоротах азота, серы и железа. Нитрификация превращает аммонийный азот в доступный растениям нитрат, но также делает азот более подвижным и способным вымываться из почвы.
11. Как измеряют фотосинтез
Интенсивность фотосинтеза нельзя свести к одному универсальному показателю. Газообменная камера измеряет изменение CO₂ или O₂, флуориметрия хлорофилла оценивает состояние фотосистем, изотопная метка показывает путь углерода, а прирост сухой массы отражает интегральный результат за длительное время. Подсчёт пузырьков у элодеи удобен для демонстрации, но пузырьки различаются по объёму, часть кислорода растворяется, а газ может содержать другие компоненты. Поэтому надёжнее собирать объём газа или использовать датчик растворённого O₂. Перед опытом растения адаптируют к условиям, чтобы переходный стресс не смешивался с исследуемым фактором.
Хороший факторный эксперимент меняет один параметр или заранее заданную комбинацию. Для световой кривой используют одинаковые фрагменты листа, постоянные температуру, CO₂, влажность и поток воздуха; порядок освещённостей рандомизируют или дают время на адаптацию. Темновое измерение оценивает дыхание, а пустая камера показывает дрейф датчика. Биологические повторности — разные растения, технические — повторные измерения одной пробы; они отвечают на разные источники вариации. Результат представляют средним и разбросом, указывают число повторов и единицы площади или массы.
12. Лист как система доставки ресурсов
Фотосинтез хлоропласта зависит от анатомии всего листа. Устьица регулируют диффузию CO₂ и потерю воды; межклетники проводят газ к клеткам мезофилла; ксилема доставляет воду и минеральные ионы; флоэма выносит сахарозу к растущим и запасающим органам. Палисадная ткань получает больше прямого света, губчатая имеет развитые воздушные полости. Толщина листа, число слоёв, ориентация хлоропластов и содержание пигментов изменяются при формировании на солнце или в тени. Поэтому два листа одной особи могут иметь разные световые кривые.
Открывание устьиц — компромисс между углеродом и водой. При водном дефиците замыкающие клетки теряют тургор, устьичная щель сужается, CO₂ внутри листа падает и фотореспирация усиливается. Если сахар не вывозится из листа, продукты накапливаются и через сигнальные пути подавляют фотосинтетические гены: источник должен быть согласован с потребителями. Дефицит азота уменьшает содержание белков и хлорофилла, дефицит магния непосредственно затрагивает хлорофилл, дефицит железа нарушает перенос электронов и синтез пигментов.
13. Фотоакклимация и защита от избытка света
Растение не пассивно переносит изменение света. На сильном свету оно уменьшает размер светособирающей антенны, меняет соотношение фотосистем, усиливает каротиноидную защиту и синтез антиоксидантов. Хлоропласты могут перемещаться вдоль стенок клеток, уменьшая прямое облучение. Быстрый ксантофилловый цикл переводит избыток возбуждения в тепло, а более медленная перестройка изменяет белковый состав тилакоидов. Если повреждение белка D1 фотосистемы II превышает скорость его ремонта, развивается фотоингибирование.
При слабом свете выгодна большая антенна и низкая точка компенсации, но максимальная скорость насыщается раньше. Солнечный лист обычно толще, содержит больше фотосинтетического аппарата на площадь и достигает большей максимальной скорости, зато требует больше ресурсов. Теневой лист эффективнее использует слабый свет. Перенос теневого растения сразу на яркий свет может снизить фотосинтез, хотя фотонов стало больше: защитные системы и структура ещё не адаптированы.
14. Интеграционная модель углеродного и энергетического баланса
Сухая масса растения определяется не валовым фотосинтезом в один момент, а балансом за время: сколько углерода зафиксировано, сколько потеряно при дыхании и фотореспирации, какая доля направлена в листья, корни, семена, защитные вещества и сколько ткани отмерло. Молодой лист сначала является потребителем сахара, затем становится источником; плод или корень может стать сильным потребителем и поддерживать вывоз сахарозы. Ночью фиксация C₃ прекращается, но дыхание продолжается, поэтому слишком тёплые ночи уменьшают чистый прирост.
Энергия и вещество проходят разные траектории. Атомы углерода могут многократно переходить между CO₂ и органическими молекулами, тогда как энергия после каждого преобразования частично рассеивается как тепло. АТФ не переносит солнечную энергию между организмами в готовом виде: она синтезируется заново в каждой клетке. Хлоропласт и митохондрия обмениваются метаболитами и восстановительными эквивалентами; днём дыхание не выключается и обеспечивает процессы, которые нельзя свести к световой фазе.
15. Углубление: энергетический баланс фотосинтеза
Световая и стромальная фазы нельзя рассматривать как независимые «полуреакции». Цикл Кальвина расходует АТФ и НАДФ·Н, поэтому его скорость определяется не только концентрацией CO₂ и активностью Rubisco, но и тем, насколько быстро тилакоидная мембрана восполняет оба продукта. Для фиксации трёх молекул CO₂ и чистого выхода одной молекулы триозофосфата требуется девять АТФ и шесть НАДФ·Н. Из этого соотношения следует вывод: линейный поток электронов часто даёт относительно меньше АТФ, чем нужно строме, и хлоропласт использует циклический поток вокруг фотосистемы I для дополнительного фосфорилирования.
При циклическом потоке электрон возвращается в цепь переносчиков, фотоны продолжают возбуждать фотосистему I, а переносчики перекачивают протоны. НАДФ·Н и кислород при этом не образуются, зато растёт протонный градиент и синтез АТФ. Поэтому наблюдение «АТФ ещё синтезируется, а O₂ не выделяется» не является противоречием: оно указывает на возможность циклического транспорта или на использование уже созданного градиента.
16. C₃-, C₄- и CAM-стратегии как решение одной проблемы
Rubisco способен присоединять не только CO₂, но и O₂. При жаре и закрытых устьицах концентрация CO₂ в листе падает, отношение O₂/CO₂ увеличивается, и фотодыхание становится заметной потерей фиксированного углерода и энергии. C₄- и CAM-растения не заменяют цикл Кальвина: они предварительно концентрируют CO₂ около Rubisco.
У C₄-растений первичная фиксация и цикл Кальвина разделены в пространстве. ФЕП-карбоксилаза в клетках мезофилла связывает CO₂ в четырёхуглеродное соединение, которое переносится в клетки обкладки проводящих пучков и там декарбоксилируется. У CAM-растений те же этапы разделены во времени: ночью открытые устьица обеспечивают фиксацию CO₂ в органические кислоты, днём устьица закрыты, кислоты отдают CO₂ циклу Кальвина. C₄-путь выгоден при высокой освещённости и температуре, CAM — при крайнем дефиците воды, но обе стратегии требуют дополнительных затрат АТФ.
17. Как читать эксперимент по фотосинтезу
Подсчёт пузырьков у водного растения удобен, но пузырьки неодинаковы по объёму, часть кислорода растворяется, а температура одновременно влияет на растворимость газа и на ферменты. Более надёжны газовый датчик, измерение концентрации растворённого O₂, поглощения CO₂ или накопления сухой массы. В каждом случае следует указать единицу измерения и нормировать результат на массу или площадь листа и время.
Если одновременно меняются освещённость и температура, причинный вывод невозможен. Источник света нагревает сосуд, поэтому применяют светодиоды, водяной фильтр или термостат. Для исследования цвета света нужно выровнять не мощность лампы «по паспорту», а поток фотонов, достигающий листа. Для независимых повторов используют разные растения или сосуды; многократное измерение одного побега остаётся технической повторностью.
18. Типичные ошибки в ответах ЕГЭ
Кислород фотосинтеза образуется из воды, а не из углекислого газа. Темновая фаза не требует темноты: её ферменты могут работать на свету, если доступны АТФ и НАДФ·Н. Хемосинтез не является «фотосинтезом без света»: источник энергии — окисление неорганических веществ, а общий признак — автотрофная фиксация углерода. Формулировка «растение дышит ночью, а фотосинтезирует днём» неполна: дыхание идёт постоянно, а чистый газообмен определяется соотношением двух процессов.