

Гликолиз, клеточное дыхание, брожение и синтез АТФ.
Содержание урока
- Метаболизм: анаболизм и катаболизм
- АТФ и переносчики электронов
- Три этапа энергетического обмена
- Подготовительный этап
- Гликолиз
- Митохондрия и компартменты дыхания
- Окисление пирувата и ацетил-КоА
- Цикл Кребса
- Дыхательная цепь
- Хемиосмос и окислительное фосфорилирование
- Энергетический баланс: школьная модель и реальность
- Брожение
- Дыхательный коэффициент и выбор субстрата
- Эксперимент по дыханию
01. Метаболизм: анаболизм и катаболизм
Метаболизм — совокупность химических превращений в клетке. Анаболические пути синтезируют сложные молекулы из более простых и требуют энергии. Катаболические расщепляют и окисляют вещества, высвобождая энергию и образуя промежуточные продукты.
Две стороны связаны. Катаболизм поставляет АТФ, восстановительную силу и строительные промежуточные соединения. Анаболизм использует их для роста, обновления и запасания. Одна и та же молекула может занимать разные места в сети в зависимости от состояния клетки.
Экзергонические и эндергонические реакции сопрягаются через АТФ, электрохимические градиенты и переносчики. Ферменты направляют потоки, а регуляция предотвращает бессмысленную одновременную работу противоположных путей.
| Признак | Анаболизм | Катаболизм |
|---|---|---|
Направление | Простые → сложные | Сложные → более простые |
Энергия | Потребляется | Высвобождается и переносится |
Типичный характер | Восстановление | Окисление |
Примеры | Синтез белка, липидов, гликогена | Гликолиз, дыхание, β-окисление |
Анаболизм и катаболизм — взаимосвязанные направления единой метаболической сети, а не два независимых процесса.
02. АТФ и переносчики электронов
АТФ передаёт энергию небольшими порциями и связывает реакции. Но значительная часть энергии окисления сначала оказывается в восстановленных переносчиках NADH и FADH₂. Они принимают электроны и протоны в реакциях дегидрирования и затем отдают электроны дыхательной цепи.
NAD⁺ и FAD — окисленные формы, NADH и FADH₂ — восстановленные. Формулировка «NADH несёт водород» допустима как упрощение, но на высоком уровне важно видеть перенос электронов. Движение электронов к более электроотрицательному акцептору высвобождает энергию.
АТФ синтезируется субстратным фосфорилированием — прямым переносом фосфата с промежуточного соединения, и окислительным фосфорилированием — за счёт протонного градиента, созданного дыхательной цепью.
| Переносчик | Окисленная форма | Восстановленная форма | Роль |
|---|---|---|---|
Никотинамидадениндинуклеотид | NAD⁺ | NADH | Перенос электронов к дыхательной цепи |
Флавинадениндинуклеотид | FAD | FADH₂ | Перенос электронов; входит в ферментные комплексы |
Аденозинфосфаты | АДФ + Pi | АТФ | Непосредственное энергетическое сопряжение |
NADH/FADH₂ переносят электроны; АТФ непосредственно сопрягает процессы; протонный градиент хранит энергию на мембране.
03. Три этапа энергетического обмена
В школьной схеме выделяют подготовительный этап, бескислородный этап и кислородный этап. Подготовительный расщепляет полимеры до мономеров; энергия в основном рассеивается как тепло. Гликолиз расщепляет глюкозу до пирувата в цитозоле и даёт небольшой чистый выход АТФ.
Аэробный этап включает окисление пирувата, цикл Кребса и дыхательную цепь. У эукариот он связан с митохондриями. У прокариот нет митохондрий, но гликолиз и цикл идут в цитоплазме, а дыхательная цепь — на плазматической мембране.
Термин «кислородный этап» удобен, но кислород непосредственно восстанавливается только в конце дыхательной цепи. Реакции цикла Кребса кислород не потребляют напрямую, однако без работы цепи восстановленные переносчики не будут эффективно возвращаться в окисленную форму.
| Этап | Место у эукариот | Основные продукты |
|---|---|---|
Подготовительный | Пищеварительные полости, лизосомы, цитозоль | Мономеры, тепло |
Гликолиз | Цитозоль | 2 пирувата, чистые 2 АТФ, 2 NADH |
Окисление пирувата | Матрикс | Ацетил-КоА, CO₂, NADH |
Цикл Кребса | Матрикс | CO₂, NADH, FADH₂, небольшое количество АТФ/ГТФ |
Дыхательная цепь | Внутренняя мембрана | H₂O, протонный градиент, основная часть АТФ |
Для каждого этапа учите четыре позиции: место, исходное вещество, продукты, способ переноса энергии.
04. Подготовительный этап
Полисахариды гидролизуются до моносахаридов, белки — до аминокислот, липиды — до глицерина и жирных кислот. У многоклеточных часть реакций идёт в пищеварительной системе, внутри клеток — в лизосомах и цитозоле.
Энергия рассеивается преимущественно в виде тепла и не учитывается как синтез АТФ в школьной модели этапа. Продукты могут вступать в энергетические пути или использоваться для анаболизма.
Подготовительный этап не равен гликолизу. Гликолиз — конкретный путь превращения глюкозы в цитозоле с образованием АТФ и NADH.
Подготовительный этап: гидролиз полимеров до мономеров; АТФ в школьной модели не запасается.
05. Гликолиз
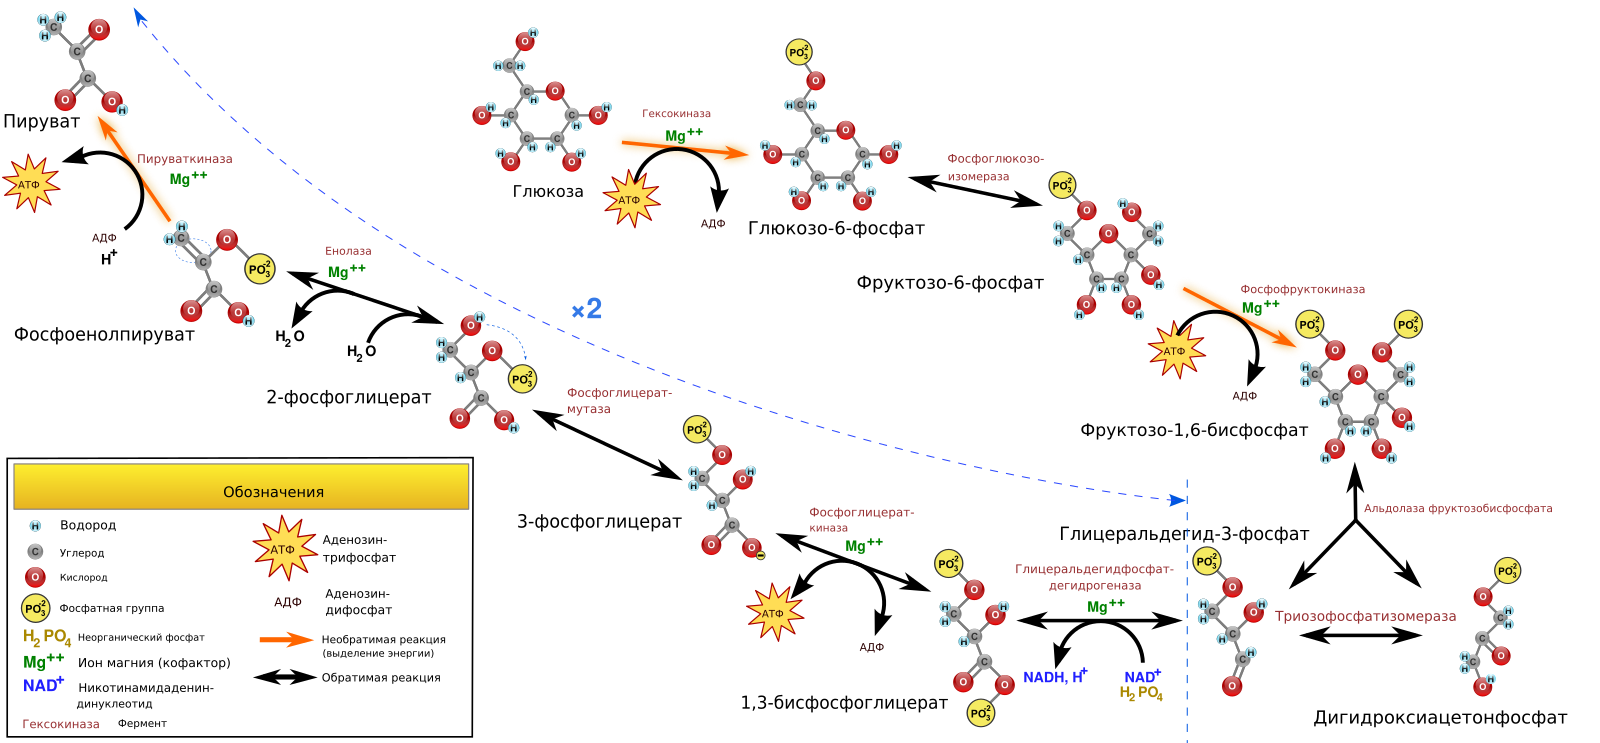
Гликолиз — последовательность реакций в цитозоле, превращающая одну молекулу глюкозы в две молекулы пирувата. В фазе вложения расходуются две АТФ; в фазе отдачи образуются четыре АТФ и два NADH. Чистый выход — две АТФ.
АТФ гликолиза образуется субстратным фосфорилированием. Кислород непосредственно не является реагентом гликолиза. Путь может идти и при наличии кислорода, и без него.
Для продолжения гликолиза нужен окисленный NAD⁺. При аэробных условиях электроны NADH передаются в митохондриальную систему. При отсутствии подходящей работы дыхательной цепи NAD⁺ регенерируется при брожении.
Разбор задач
Чистый выход. Израсходовано 6 молекул глюкозы. Сколько чистых АТФ даст только гликолиз?
Решение. По 2 на глюкозу: 12 АТФ.
Углерод. Сколько молекул пирувата и атомов углерода в них образуется из 5 глюкоз?
Решение. 10 пируватов; каждый содержит 3 C, всего 30 атомов C.
Гликолиз: цитозоль; 1 глюкоза → 2 пирувата; чистые 2 АТФ; 2 NADH; прямого потребления O₂ нет.
06. Митохондрия и компартменты дыхания
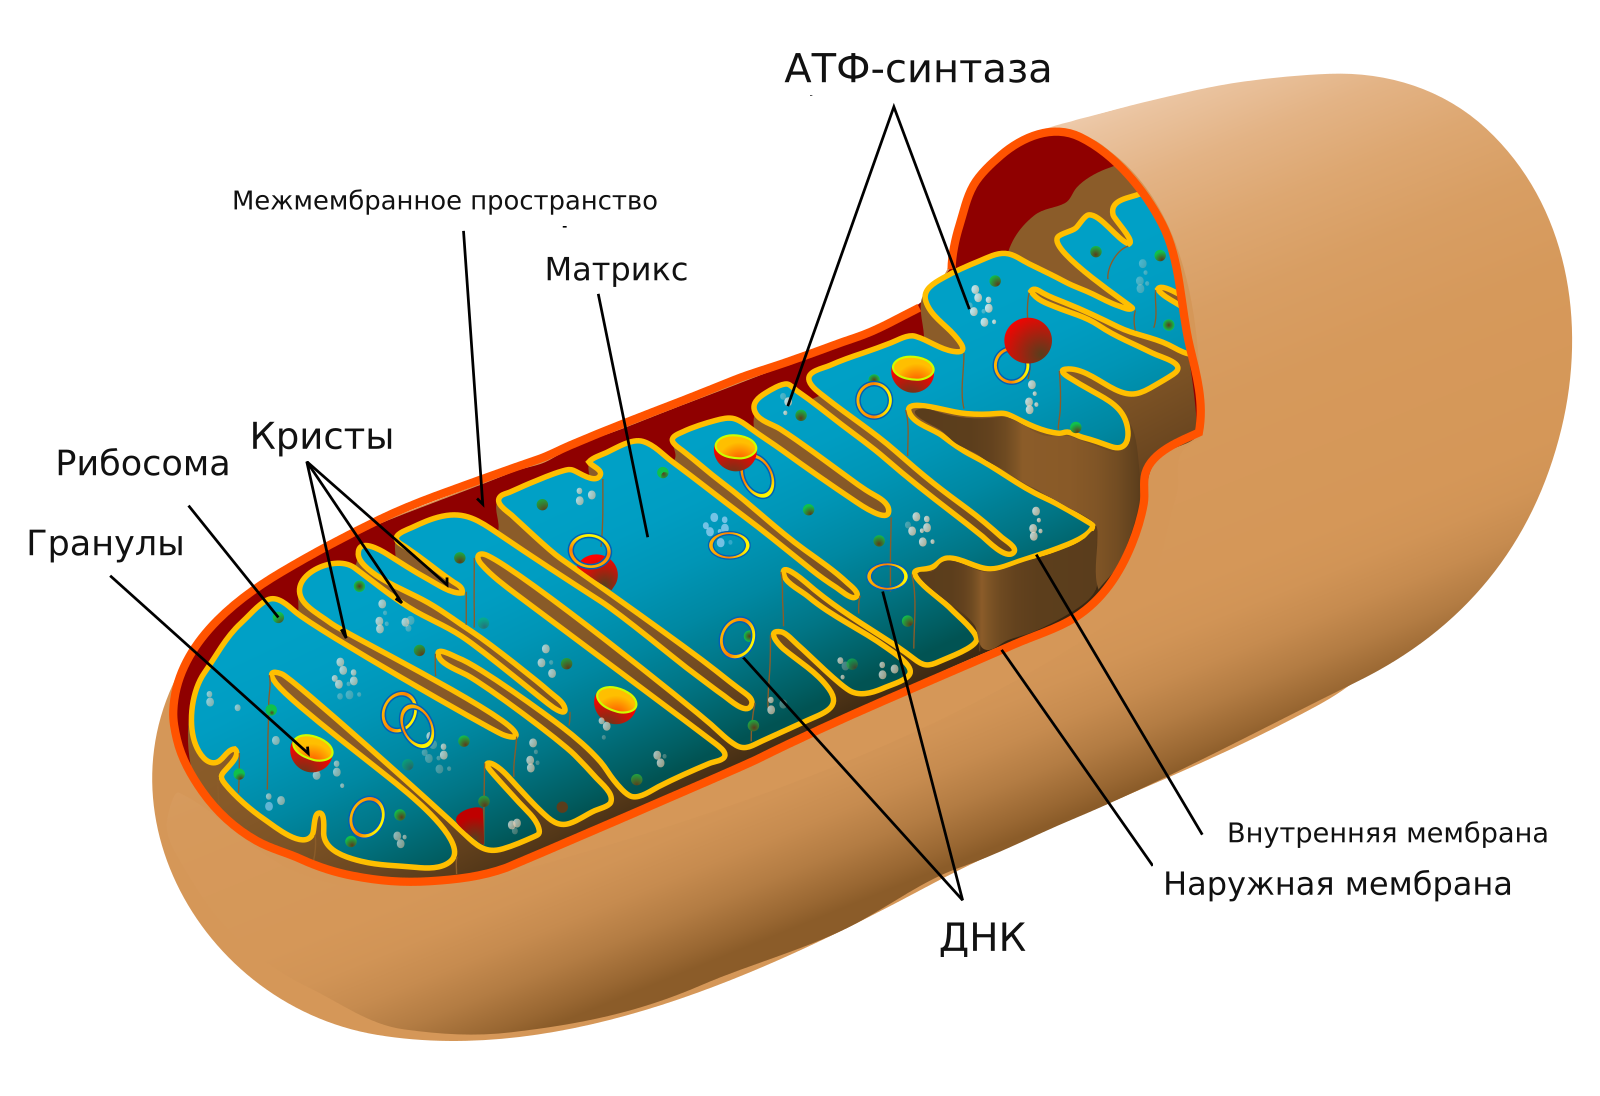
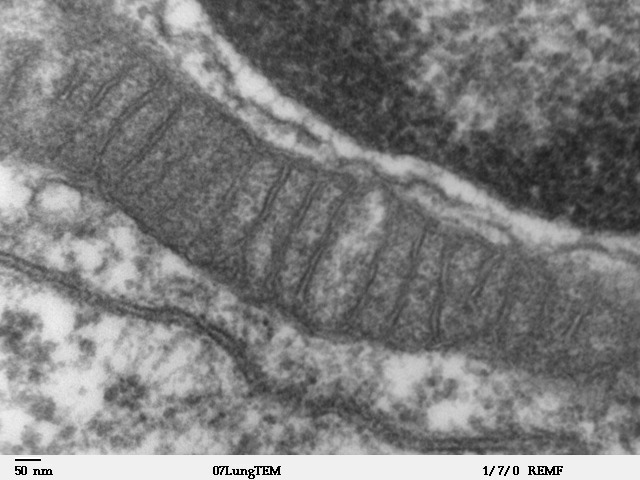
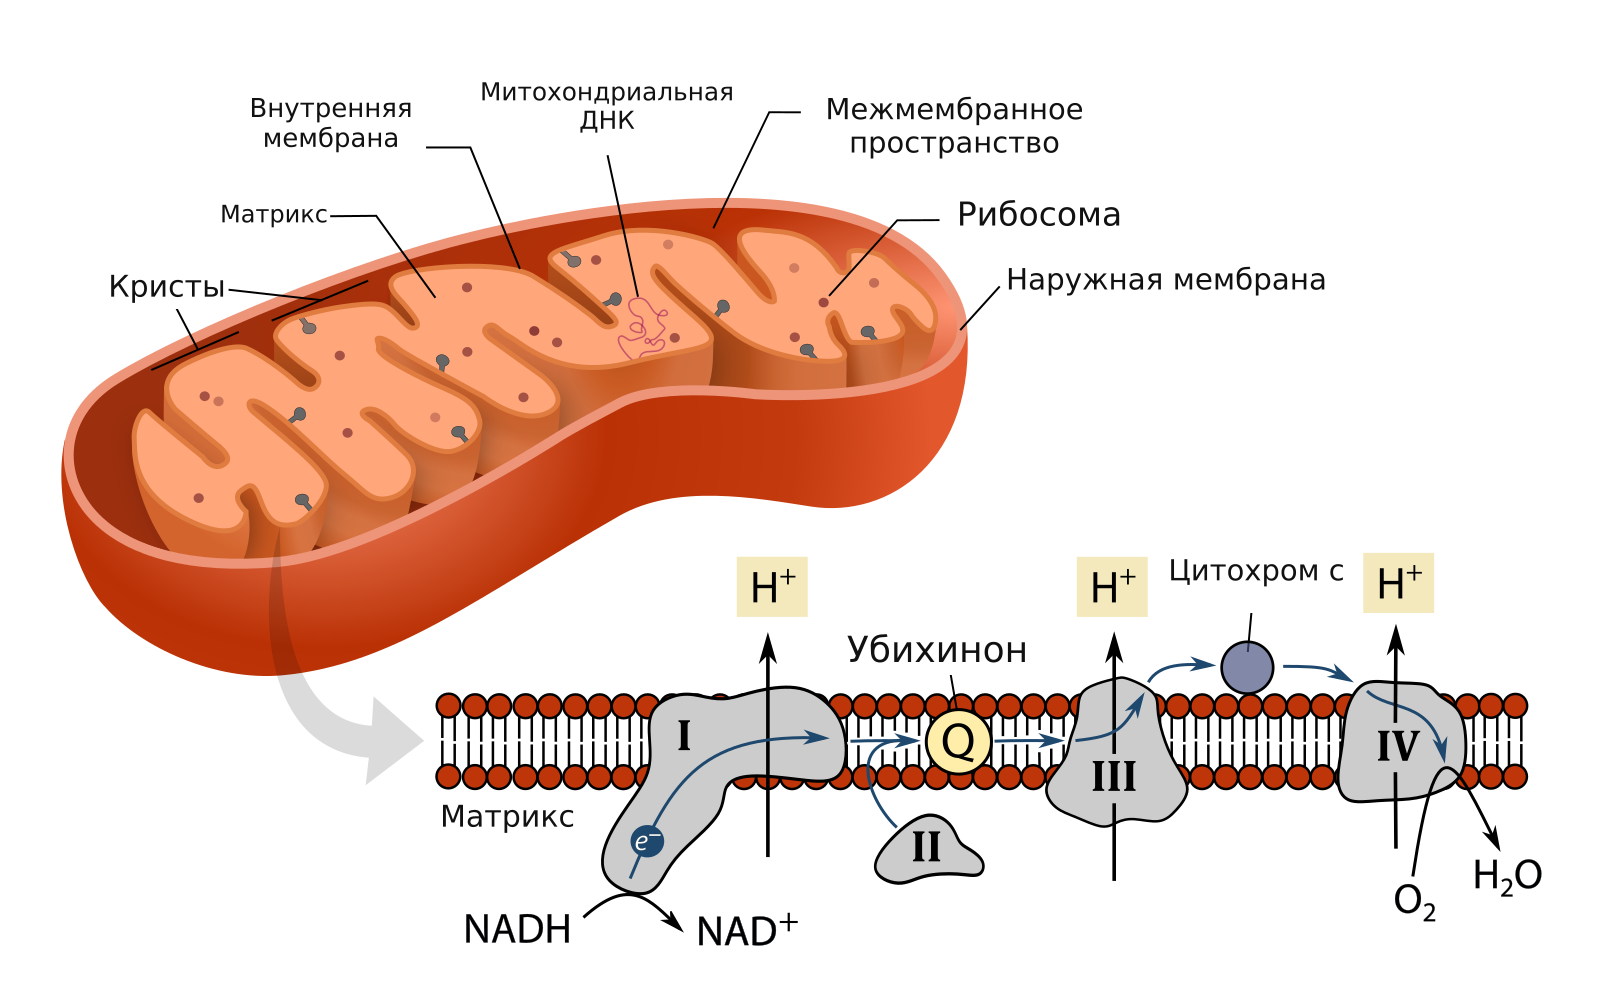
Наружная мембрана отделяет органоид, внутренняя образует кристы и значительно менее проницаема для ионов. Матрикс содержит ферменты окисления пирувата и цикла Кребса. На внутренней мембране расположены комплексы переноса электронов и АТФ-синтаза.
Межмембранное пространство необходимо для накопления протонов. Если внутренняя мембрана станет свободно проницаемой для H⁺, градиент исчезнет и синтез АТФ снизится, даже если перенос электронов частично продолжается.
Число крист связано с энергетической специализацией клетки: мышцы и другие активные клетки обычно имеют много митохондрий и развитую внутреннюю мембрану. Это функциональная корреляция, а не правило без исключений.
Матрикс — реакции цикла; внутренняя мембрана — дыхательная цепь и АТФ-синтаза; межмембранное пространство — накопление H⁺.
07. Окисление пирувата и ацетил-КоА
Пируват поступает в митохондрию и превращается в ацетильную группу, связанную с коферментом A. При этом один атом углерода выделяется как CO₂, а NAD⁺ восстанавливается до NADH. Из одной глюкозы образуются две молекулы ацетил-КоА.
Ацетил-КоА — узловой метаболит: он образуется не только из углеводов, но и при расщеплении жирных кислот и некоторых аминокислот. Поэтому цикл Кребса является общим путём окончательного окисления разных субстратов.
Нельзя писать, что кислород расщепляет пируват напрямую. Роль кислорода проявляется позже, поддерживая окисление переносчиков в дыхательной цепи.
На одну глюкозу: 2 пирувата → 2 ацетил-КоА + 2 CO₂ + 2 NADH (в школьной стехиометрической схеме).
08. Цикл Кребса
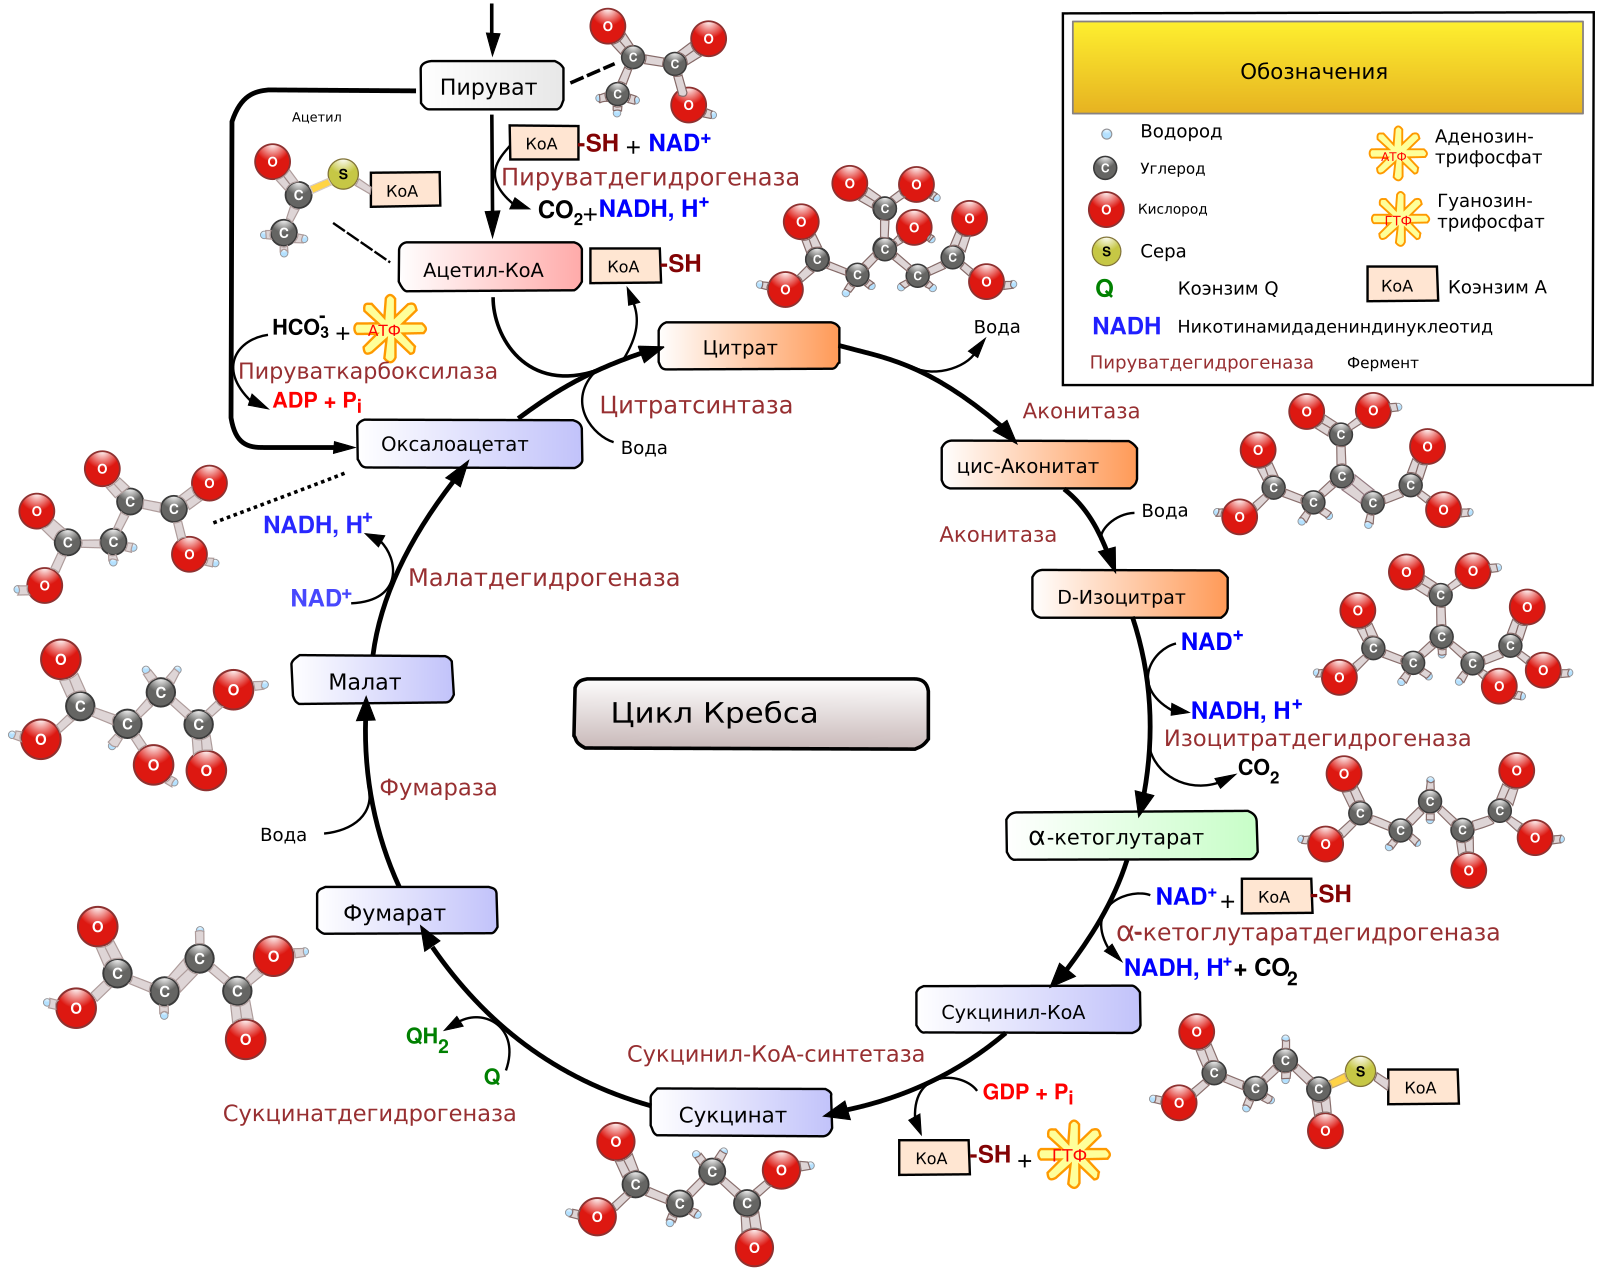
Ацетильная группа соединяется с четырёхуглеродным акцептором, образуя шестиуглеродное соединение. В серии реакций два атома углерода выделяются как CO₂, восстанавливаются NAD⁺ и FAD, синтезируется небольшое количество АТФ или ГТФ, а акцептор регенерируется.
Главный энергетический продукт цикла — не непосредственная АТФ, а восстановленные переносчики NADH и FADH₂. Они доставляют высокоэнергетические электроны дыхательной цепи.
Цикл называется циклом, потому что исходный акцептор ацетильной группы восстанавливается. Атомы углерода конкретной ацетильной группы не обязательно покидают цикл как CO₂ в первом же обороте; школьная суммарная схема не отслеживает отдельные атомы во времени.
Цикл Кребса полностью окисляет ацетильные фрагменты до CO₂ и концентрирует энергию в NADH/FADH₂.
09. Дыхательная цепь
NADH и FADH₂ отдают электроны белковым комплексам внутренней мембраны. Электроны последовательно переходят к переносчикам с большей способностью их принимать. Высвобождаемая энергия используется для перекачки H⁺ из матрикса в межмембранное пространство.
Кислород принимает электроны в конце цепи и вместе с протонами образует воду. Если кислорода нет, поток электронов останавливается, переносчики остаются восстановленными, протонный градиент не поддерживается.
Ингибитор отдельного комплекса снижает поток электронов и синтез АТФ. Разобщитель может позволить протонам вернуться в матрикс в обход АТФ-синтазы: дыхание и расход субстрата продолжаются или усиливаются, но энергия рассеивается как тепло.
Дыхательная цепь превращает энергию электронов в протонный градиент; кислород — конечный акцептор электронов.
10. Хемиосмос и окислительное фосфорилирование
Протоны накапливаются по одну сторону внутренней мембраны. Возникает электрохимический градиент — протон-движущая сила. Возврат H⁺ в матрикс через АТФ-синтазу вызывает конформационные изменения фермента и синтез АТФ из АДФ и Pi.
Мембрана здесь не просто подставка для белков. Её непроницаемость для H⁺ необходима для хранения градиента. Увеличение площади крист позволяет разместить больше комплексов цепи и АТФ-синтазы.
Окислительное фосфорилирование связывает окисление переносчиков с фосфорилированием АДФ. Связь не химическая «один к одному», а мембранная: перенос электронов → перекачка H⁺ → градиент → поток через АТФ-синтазу.
Разбор задач
Повреждение мембраны. Внутренняя мембрана стала проницаемой для H⁺.
Решение. Градиент уменьшается; поток H⁺ через АТФ-синтазу и синтез АТФ снижаются. Энергия окисления рассеивается.
Нет кислорода. Что произойдёт с NADH и NAD⁺?
Решение. NADH хуже окисляется в цепи, NAD⁺ становится дефицитнее; цикл и окисление пирувата замедляются.
Хемиосмос: перенос электронов создаёт градиент H⁺; обратный поток через АТФ-синтазу приводит к синтезу АТФ.
11. Энергетический баланс: школьная модель и реальность
В традиционной школьной расчётной модели часто используют 2 АТФ гликолиза и 36 АТФ кислородного этапа, всего 38 АТФ на глюкозу. В задачах нужно следовать указанной модели и данным условия. Если автор прямо задаёт выход этапа, используйте его.
В реальной клетке выход не фиксирован одной цифрой: различаются способы переноса цитозольных электронов в митохондрию, есть утечки протонов, транспортные затраты и разные коэффициенты сопряжения. Поэтому биохимические оценки часто ниже и представлены диапазоном.
Расчёты выполняют по модели, указанной в условии задачи. Такая модель упрощает реальный энергетический баланс; её коэффициенты нельзя смешивать с оценками, полученными при других допущениях.
Разбор задач
Школьная модель. Полностью окислились 4 молекулы глюкозы. Сколько АТФ образовалось при условии 38 АТФ на глюкозу?
Решение. 4 × 38 = 152 АТФ.
Сравнение этапов. Из 190 АТФ сколько приходится на гликолиз при 5 глюкозах?
Решение. Чистый выход гликолиза: 5 × 2 = 10 АТФ; остальные относятся к другим этапам модели.
В расчётной задаче сначала выпишите принятую модель выхода АТФ; затем умножайте на число молекул субстрата.
12. Брожение
Брожение не даёт дополнительной АТФ сверх гликолиза. Его главная функция — окислить NADH до NAD⁺, чтобы гликолиз мог продолжаться при невозможности использовать дыхательную цепь.
При молочнокислом брожении пируват восстанавливается до лактата; CO₂ не выделяется. При спиртовом пируват сначала теряет CO₂, затем образуется этанол. Дрожжи используют этот путь; CO₂ разрыхляет тесто, этанол важен в бродильных производствах.
Накопление лактата связано с интенсивной работой и анаэробным вкладом, но мышечная усталость имеет несколько причин. Не сводите её полностью к «молочной кислоте». Лактат может транспортироваться и использоваться как метаболическое топливо.
| Признак | Молочнокислое | Спиртовое |
|---|---|---|
Конечный продукт | Лактат | Этанол + CO₂ |
CO₂ | Не выделяется | Выделяется |
Главная роль | Регенерация NAD⁺ | Регенерация NAD⁺ |
АТФ | Только 2 чистые АТФ гликолиза | Только 2 чистые АТФ гликолиза |
Брожение регенерирует NAD⁺. Чистый энергетический выход на глюкозу — 2 АТФ гликолиза.
13. Дыхательный коэффициент и выбор субстрата
Дыхательный коэффициент RQ — отношение выделенного CO₂ к поглощённому O₂. Для углеводов в типичной модели он близок к 1; для жиров ниже, потому что восстановленные молекулы жира требуют больше кислорода на единицу углерода.
RQ помогает предположить преимущественный субстрат, но не идентифицирует его однозначно. Смесь субстратов, органические кислоты, неполное окисление и другие процессы меняют показатель.
Сравнивая семена, учитывайте состояние: проросшие активно дышат, сухие — значительно слабее. Массу и температуру образцов стандартизируют.
Разбор задач
Расчёт RQ. Поглощено 50 мл O₂, выделено 40 мл CO₂.
Решение. RQ = 40/50 = 0,8. Это совместимо со смешанным использованием субстратов; одного значения недостаточно для точной идентификации.
RQ = объём CO₂ / объём O₂. Это косвенный показатель, вывод по нему должен быть ограниченным.
14. Эксперимент по дыханию
В закрытом респирометре проросшие семена поглощают O₂ и выделяют CO₂. Если CO₂ связывается щёлочью, уменьшение объёма газа отражает поглощение кислорода. Движение капли в капилляре позволяет сравнивать скорость.
Нужен контроль с непроросшими или термически обработанными семенами того же объёма. Контролируют массу, температуру, время, герметичность и объём камеры. Для сравнения корректнее рассчитывать скорость на единицу массы и времени.
Если температура повышается в умеренном диапазоне, скорость ферментативных реакций может расти; выше оптимума — падать из-за повреждения белков и мембран. Не переносите вывод за исследованный диапазон.
Разбор задач
Направление капли. CO₂ связан щёлочью, семена поглощают O₂.
Решение. Давление/объём газа в камере с семенами уменьшается; капля смещается к этой камере при соответствующей конструкции.
Ошибка. В опыте сравнили 5 г проросших и 20 г сухих семян.
Решение. Массы не стандартизированы. Нужно сравнивать скорость на единицу массы или взять равные массы.
Респирометр оценивает газообмен косвенно. Интерпретация зависит от связывания CO₂, герметичности и контроля температуры.