

Биомолекулы, ферменты, АТФ и буферные системы.
Содержание урока
- Буферные системы и постоянство pH
- Химические элементы живых систем
- Вода: строение определяет свойства
- Минеральные соли, ионы и осмотические свойства
- pH: логарифмическая шкала
- Буферность и буферные системы
- Углеводы: от моносахарида к функции
- Липиды и принцип гидрофобности
- Белки: уровни структуры и функции
- Ферменты: катализ и специфичность
- Нуклеотиды и нуклеиновые кислоты
- АТФ и энергетическое сопряжение
- Качественные реакции и логика эксперимента
01. Буферные системы и постоянство pH
70+
После короткого интенсивного бега в работающих мышцах усиливается образование продуктов обмена, способных повышать концентрацию ионов H⁺. Если бы каждый добавленный H⁺ оставался свободным, pH внутренней среды быстро вышел бы из рабочего диапазона, белки изменили бы заряд и форму, а многие ферменты потеряли бы активность. Однако pH меняется гораздо слабее, чем можно ожидать. Причина — буферные системы: пары веществ, которые обратимо связывают избыток H⁺ или отдают его при недостатке.
Эта история связывает весь урок. Вода создаёт среду реакций. Ионы определяют заряд и осмотические свойства. Белки выполняют большую часть каталитической и структурной работы. Нуклеотиды переносят информацию и энергию. Буферы удерживают условия, в которых вся система может работать.
70+ · Основное
Буферная система — смесь слабой кислоты и сопряжённого основания либо слабого основания и сопряжённой кислоты, способная уменьшать изменение pH при добавлении небольших количеств кислоты или щёлочи.
02. Химические элементы живых систем
70+
В клетке обнаруживаются десятки химических элементов, но их роль не выводится только из массовой доли. Углерод удобен для построения разнообразных цепей и колец; водород и кислород входят в воду и органические вещества; азот необходим аминокислотам и азотистым основаниям. Эти четыре элемента часто называют органогенами.
Макроэлементы содержатся в сравнительно больших количествах или выполняют массовые структурные и регуляторные функции. Фосфор входит в нуклеотиды, фосфолипиды и костную ткань; сера — в некоторые аминокислоты; кальций участвует в опоре, свёртывании крови и сигнализации; натрий и калий поддерживают мембранные потенциалы; магний необходим многим ферментам и входит в хлорофилл.
Микроэлементов мало, но дефицит может нарушить работу целой системы. Железо входит в гемоглобин и белки переноса электронов; йод — в гормоны щитовидной железы; цинк и медь входят в активные центры ферментов. Корректная причинная цепочка строится так: дефицит элемента → нарушение конкретной молекулы или процесса → изменение функции органа или организма.
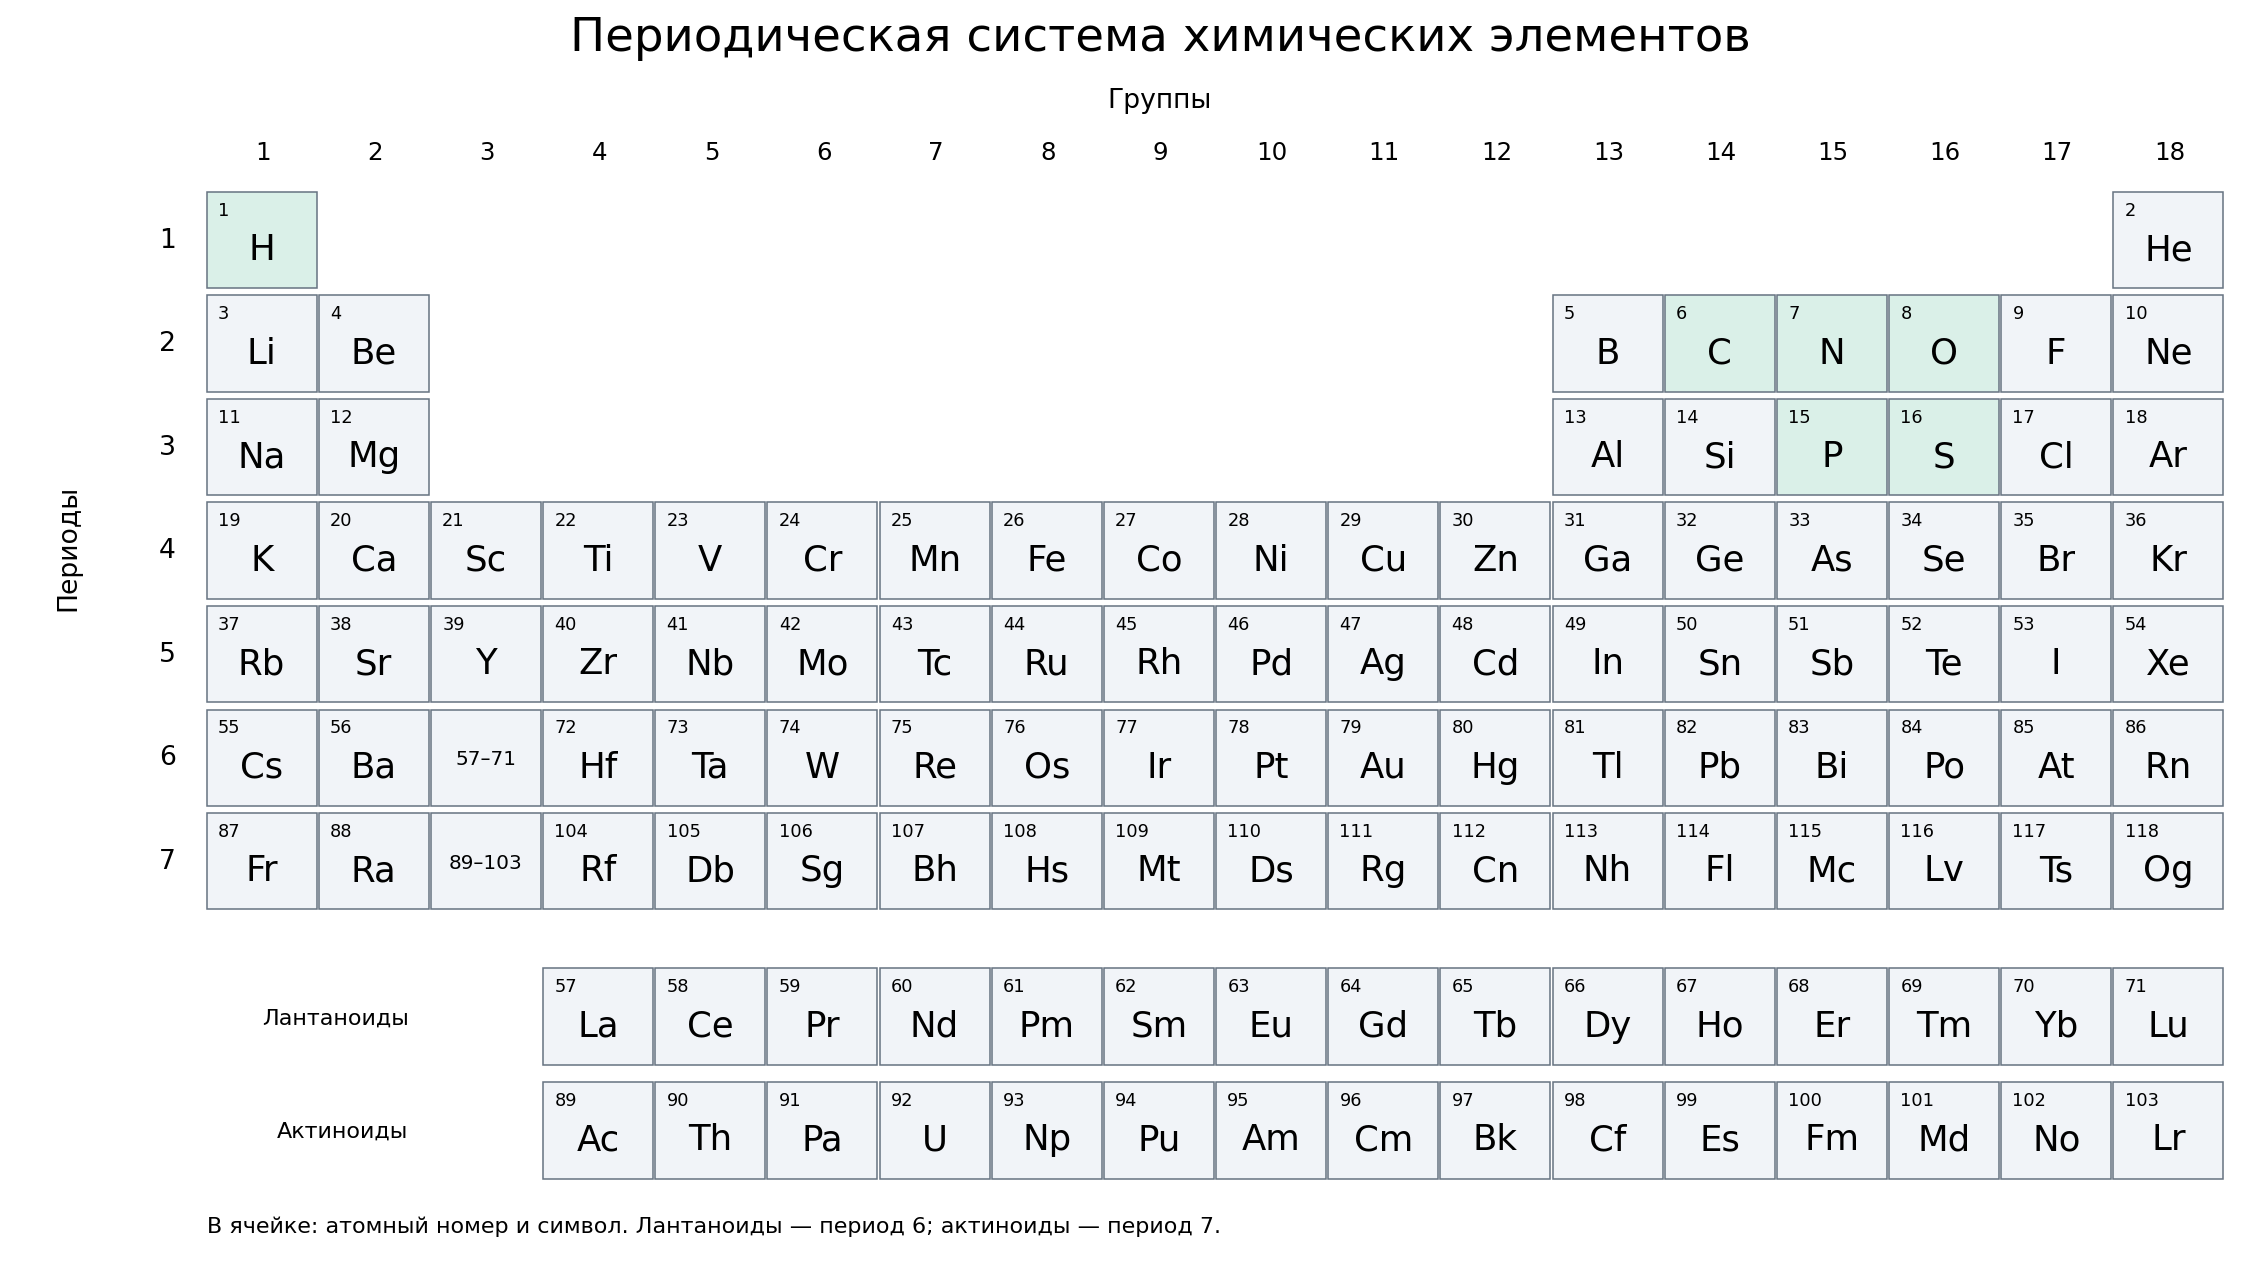
Группы 1–18 и периоды 1–7. Атомные номера и символы сверены по периодической системе IUPAC. В учебной таблице показаны атомные номера и символы элементов.
Рисунок. Периодическая система химических элементов
Элемент | Биологическая роль | Пример последствия дефицита |
|---|---|---|
P | Нуклеотиды, АТФ, фосфолипиды, минеральная часть костей | Нарушение энергетического и минерального обмена |
Fe | Гемоглобин, цитохромы | Снижение переноса O₂, слабость |
I | Тиреоидные гормоны | Нарушение регуляции обмена веществ |
Mg | Кофактор ферментов, хлорофилл | Нарушение фотосинтеза и ферментативных реакций |
Ca | Опора, сокращение, секреция, свёртывание | Нарушение костной ткани и клеточной сигнализации |
70+ · Основное
Органогены: C, H, O, N. Биологическую роль элемента объясняют через молекулу или процесс, в котором он участвует.
03. Вода: строение определяет свойства
70+
Молекула воды полярна: кислород сильнее притягивает общую электронную плотность и несёт частичный отрицательный заряд, атомы водорода — частичный положительный. Между соседними молекулами возникают водородные связи. Каждая связь сравнительно слабая, но их множество создаёт заметный суммарный эффект.
Высокая удельная теплоёмкость воды сглаживает температурные колебания: на разрыв части водородных связей требуется энергия. Высокая теплота испарения позволяет охлаждать организм при потоотделении или транспирации. Когезия поддерживает непрерывность водного столба в ксилеме, а адгезия помогает воде взаимодействовать со стенками сосудов.
Как растворитель вода окружает ионы и полярные молекулы гидратными оболочками. Гидрофобные неполярные молекулы не образуют выгодных взаимодействий с водой и группируются; это лежит в основе самосборки мембран. Вода участвует и как реагент: гидролиз расщепляет связь с присоединением компонентов воды, а в реакциях конденсации вода может выделяться.
На экзамене недостаточно сказать «вода — универсальный растворитель». Точнее: вода хорошо растворяет многие ионные и полярные вещества благодаря собственной полярности. Неполярные липиды растворяются плохо.
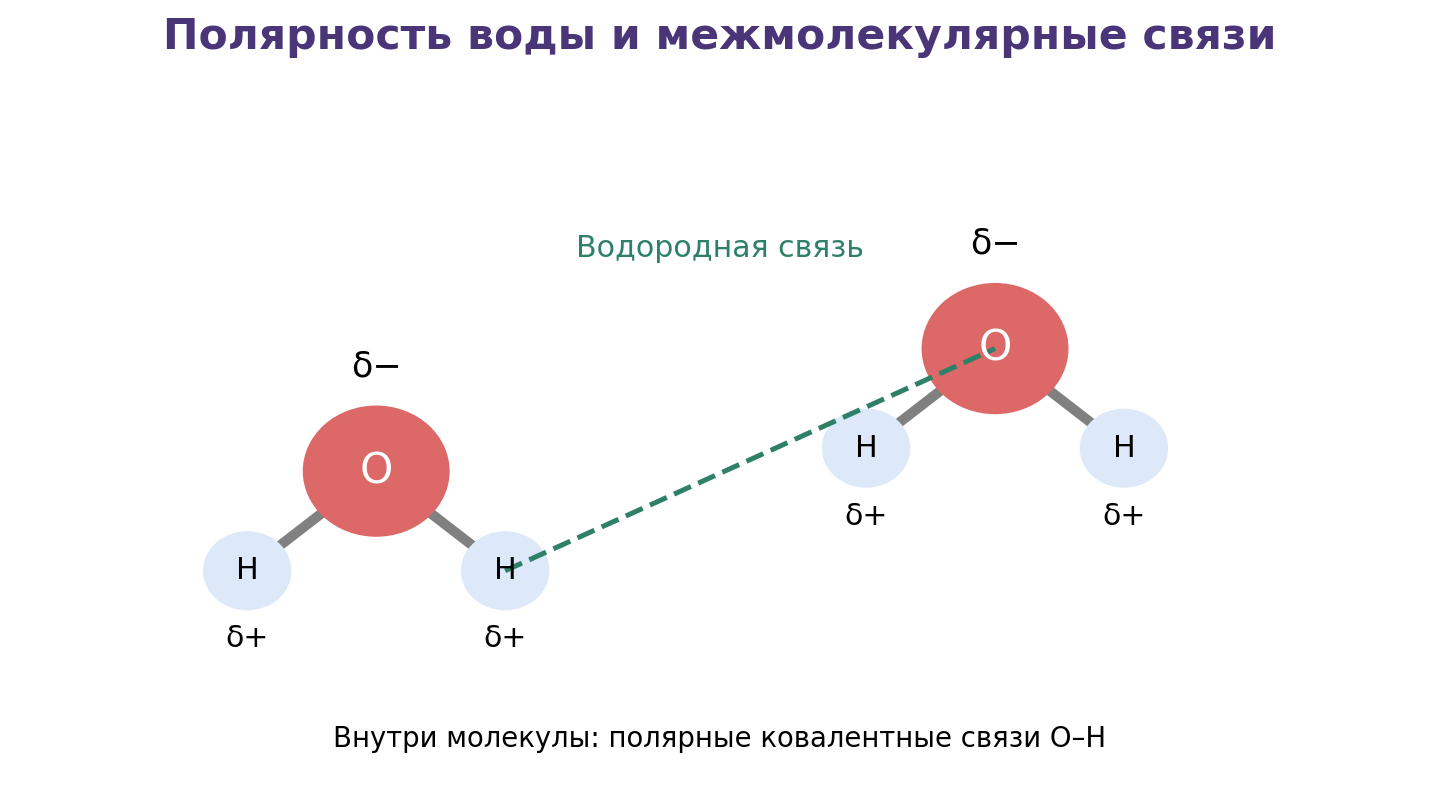
Рисунок. Водородные связи между молекулами воды
Свойство | Молекулярная причина | Биологическое значение |
|---|---|---|
Растворяющая способность | Полярность и гидратация | Среда реакций и транспорт веществ |
Высокая теплоёмкость | Много водородных связей | Стабилизация температуры |
Высокая теплота испарения | Затраты энергии на переход в газ | Охлаждение при испарении |
Когезия | Притяжение молекул воды | Непрерывный столб воды в растении |
Малая сжимаемость | Плотная упаковка молекул | Гидростатическая опора |
70+ · Основное
Полярность воды → водородные связи и гидратация → растворение, транспорт, терморегуляция и участие в реакциях.
04. Минеральные соли, ионы и осмотические свойства
70+
Минеральные соли в клетке находятся в виде ионов или твёрдых отложений. Ионы поддерживают осмотическое давление, кислотно-основное равновесие, мембранный потенциал и работу ферментов. Нерастворимые соли образуют опорные структуры: например, минеральную основу костей и зубов.
Осмотические свойства зависят от числа растворённых частиц, а не от их общей массы. Один моль NaCl после диссоциации создаёт больше частиц, чем один моль недиссоциирующего сахара. Однако в биологических задачах всегда проверяйте, проницаема ли мембрана для данного вещества: тоничность определяется эффективными, не проходящими свободно частицами.
Катионы и анионы не распределены равномерно. В цитоплазме и межклеточной жидкости различаются концентрации K⁺, Na⁺, Cl⁻ и других ионов. Эти градиенты будут нужны в следующем уроке для объяснения активного транспорта и потенциала мембраны.
70+ · Основное
Ионы выполняют осмотическую, электрическую, каталитическую и структурную функции. В причинной цепочке называйте конкретный ион и процесс.
05. pH: логарифмическая шкала
80+
pH отражает концентрацию ионов H⁺: pH = −lg[H⁺]. Для школьных задач главное следствие — шкала логарифмическая. Раствор с pH 3 содержит примерно в 10 раз больше H⁺, чем раствор с pH 4, и в 100 раз больше, чем раствор с pH 5.
Нейтральность не всегда означает «безопасность», а кислотность не равна концентрации любой кислоты по массе. pH описывает состояние раствора. В клетке разные компартменты поддерживают разные значения: лизосомы имеют кислую среду, цитозоль близок к нейтральной, а в тилакоидах и межмембранном пространстве временно формируются протонные градиенты.
Изменение pH влияет на заряд боковых радикалов аминокислот. Это может нарушить ионные взаимодействия, форму активного центра и связывание субстрата. При сильном воздействии происходит денатурация. Не пишите, что pH «разрывает пептидные связи», если в условии нет гидролиза: первичная структура часто сохраняется.
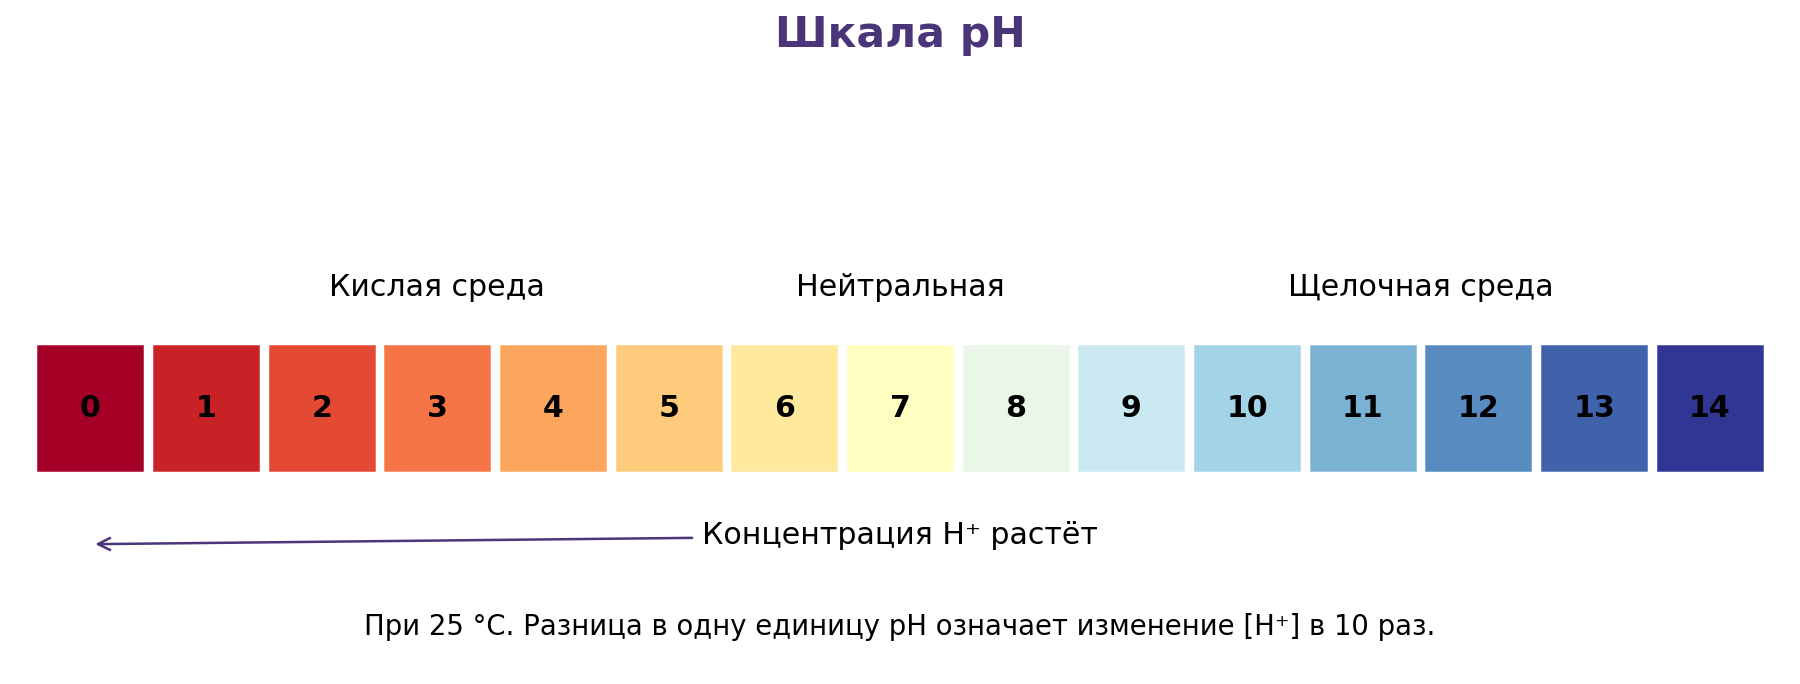
Рисунок. Шкала pH
80+ · Основное
Разница в одну единицу pH соответствует десятикратной разнице [H⁺]. pH влияет на заряд, структуру и активность белков.
06. Буферность и буферные системы
80+
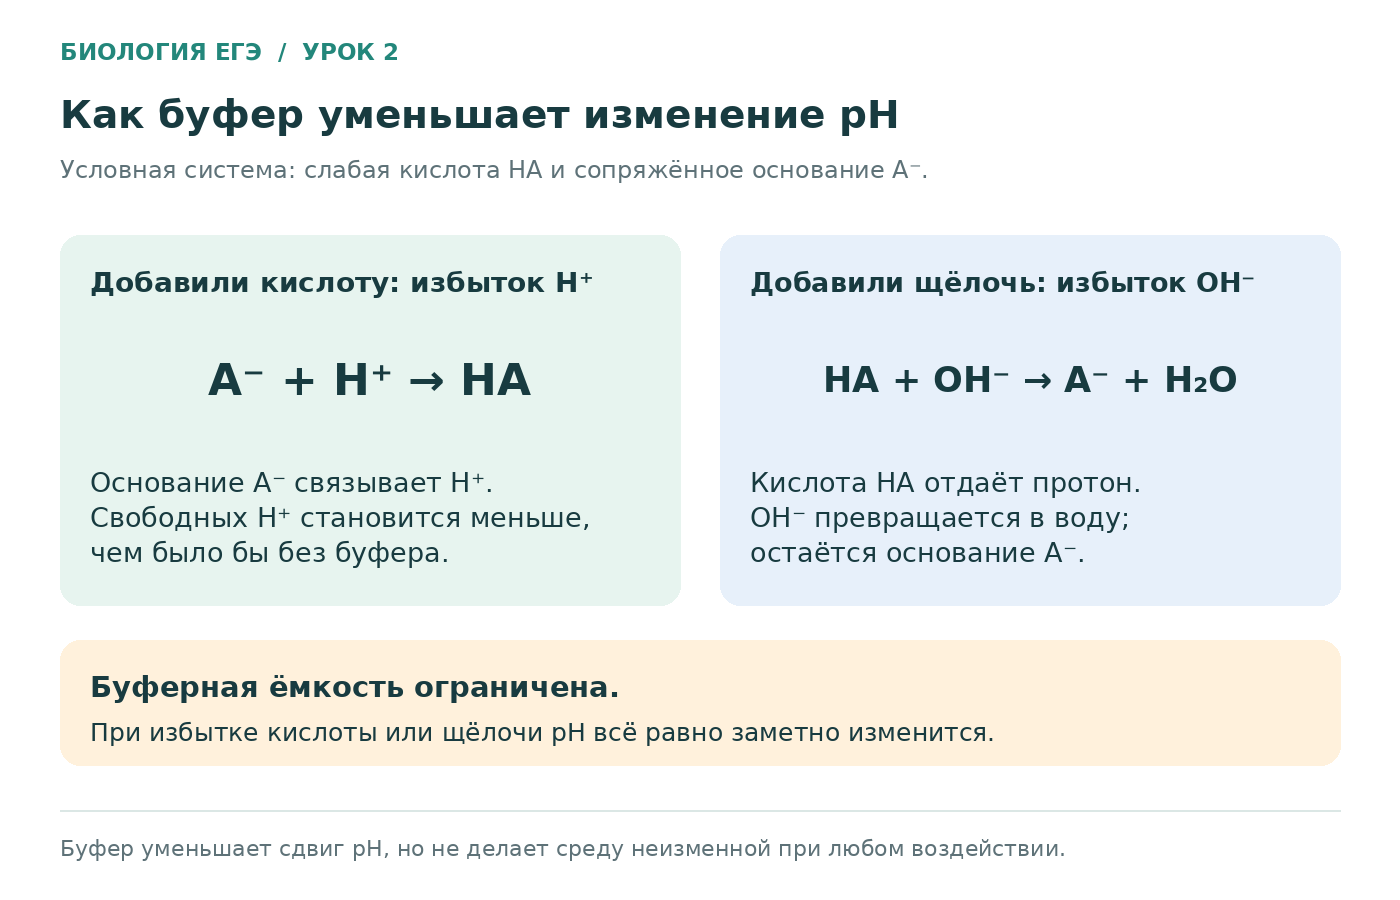
Буфер содержит компоненты, способные обратимо принять или отдать H⁺. Если в систему добавили кислоту, сопряжённое основание связывает часть H⁺. Если добавили щёлочь, слабая кислота отдаёт H⁺, и OH⁻ превращается в воду. Поэтому свободная концентрация H⁺ изменяется слабее, чем в воде без буфера.
Бикарбонатная система крови условно описывается парой H₂CO₃/HCO₃⁻. Фосфатная система важна внутри клеток и в почках. Белки также буферируют среду: некоторые боковые радикалы и концевые группы могут принимать или отдавать протоны. Гемоглобин участвует в связывании H⁺ в эритроцитах.
Буферная ёмкость зависит от концентрации компонентов и их соотношения. Если добавить слишком много кислоты, запас компонента, связывающего H⁺, исчерпается, и pH начнёт резко падать. Лучшее буферное действие наблюдается вблизи характерной области равновесия пары.
В опыте сравнивают равные объёмы воды и буферного раствора. К каждому по каплям добавляют одинаковую кислоту и измеряют pH. Независимая переменная — тип раствора или число добавленных капель, зависимая — pH. Объём, температура, концентрация кислоты и способ перемешивания должны быть одинаковыми.
Добавление | Компонент буфера | Что происходит |
|---|---|---|
Небольшое количество кислоты | Сопряжённое основание | Связывает часть H⁺; образуется слабая кислота |
Небольшое количество щёлочи | Слабая кислота | Отдаёт H⁺; OH⁻ связывается с образованием воды |
Кислоты больше ёмкости | Компонент исчерпан | pH меняется резко |
80+ · Основное
Буфер не исключает изменение pH, а уменьшает его. Компоненты действуют обратимо и имеют ограниченную ёмкость.
07. Углеводы: от моносахарида к функции
70+
Моносахариды — простые сахара, которые не гидролизуются до более простых углеводов. Глюкоза служит субстратом энергетического обмена; рибоза и дезоксирибоза входят в нуклеотиды. Дисахариды состоят из двух остатков моносахаридов, полисахариды — из множества.
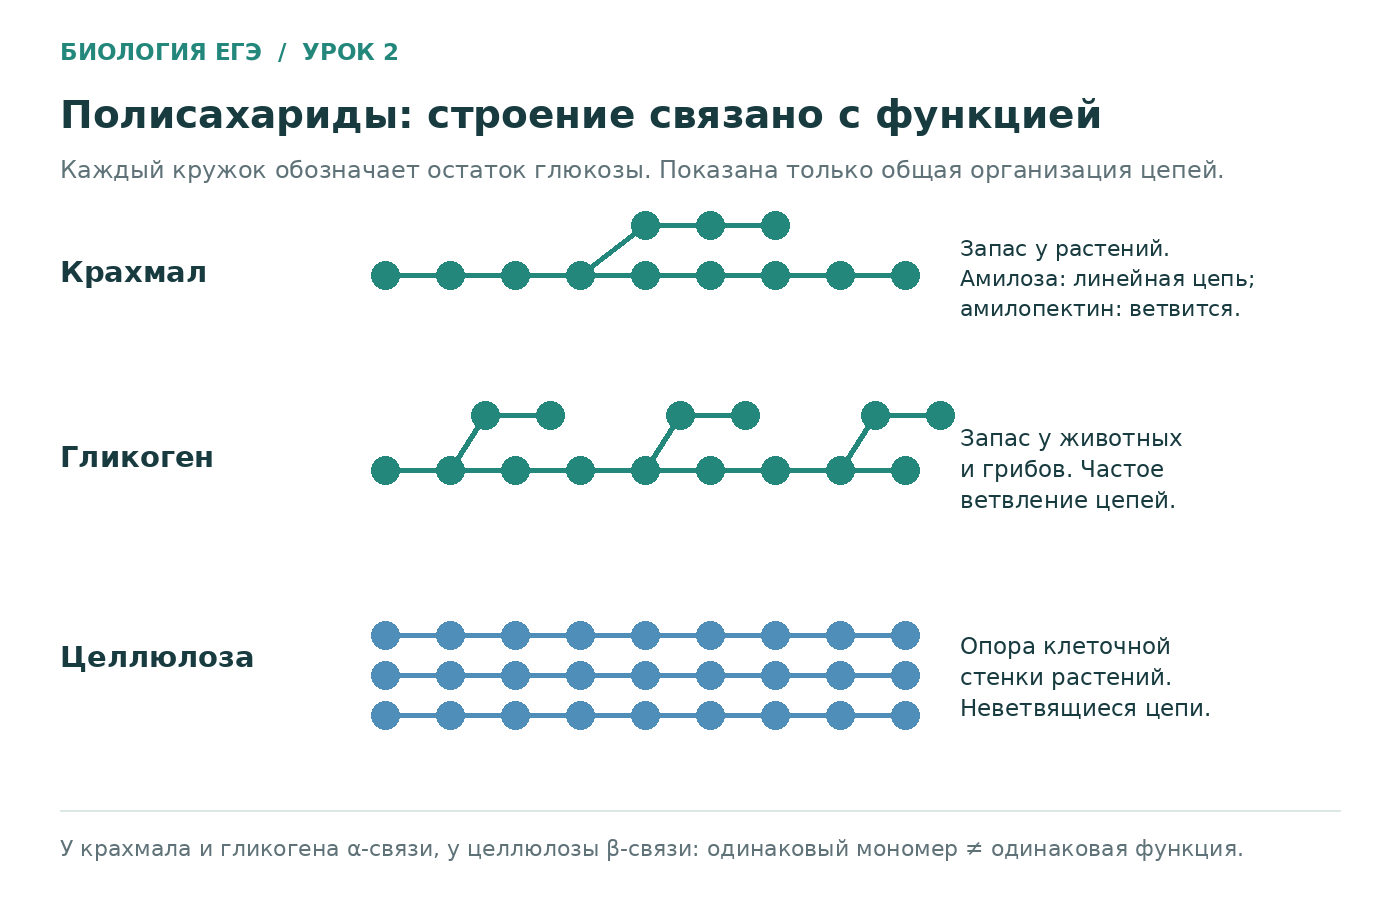
Крахмал и гликоген — запасные полисахариды глюкозы. Гликоген сильнее разветвлён, что создаёт много концов цепей и позволяет быстро мобилизовать глюкозные остатки. Целлюлоза имеет иное пространственное строение связей; прямые цепи образуют прочные волокна клеточной стенки растений.
Одинаковый набор мономеров не означает одинаковую функцию полимера. Важны тип связи, ветвление, длина цепи и пространственная укладка. Это общий принцип биологии: функция определяется не только составом, но и организацией.
| Класс веществ | Строительные единицы |
|---|---|
Белки | Аминокислоты, соединённые пептидными связями |
Полисахариды | Остатки моносахаридов, соединённые гликозидными связями |
ДНК и РНК | Нуклеотиды, соединённые фосфодиэфирными связями |
Липиды | Не являются типичными полимерами. Триацилглицерол содержит глицерин и три остатка жирных кислот. |
Вещество | Строение | Главная функция |
|---|---|---|
Глюкоза | Моносахарид | Энергетический субстрат |
Сахароза | Дисахарид | Транспортная форма углевода у многих растений |
Крахмал | Полимер α-глюкозы | Запас у растений |
Гликоген | Сильно разветвлённый полимер α-глюкозы | Запас у животных и грибов |
Целлюлоза | Прямые цепи β-глюкозы | Клеточная стенка растений |
70+ · Основное
Углеводы выполняют энергетическую, запасную, структурную и рецепторную функции. Для полимера называйте мономер и функцию.
08. Липиды и принцип гидрофобности
70+
Липиды — химически неоднородная группа веществ, объединяемая слабой растворимостью в воде и хорошей растворимостью во многих неполярных растворителях. Поэтому не следует называть все липиды полимерами: триацилглицеролы и фосфолипиды не построены как длинные цепи повторяющегося одного мономера.
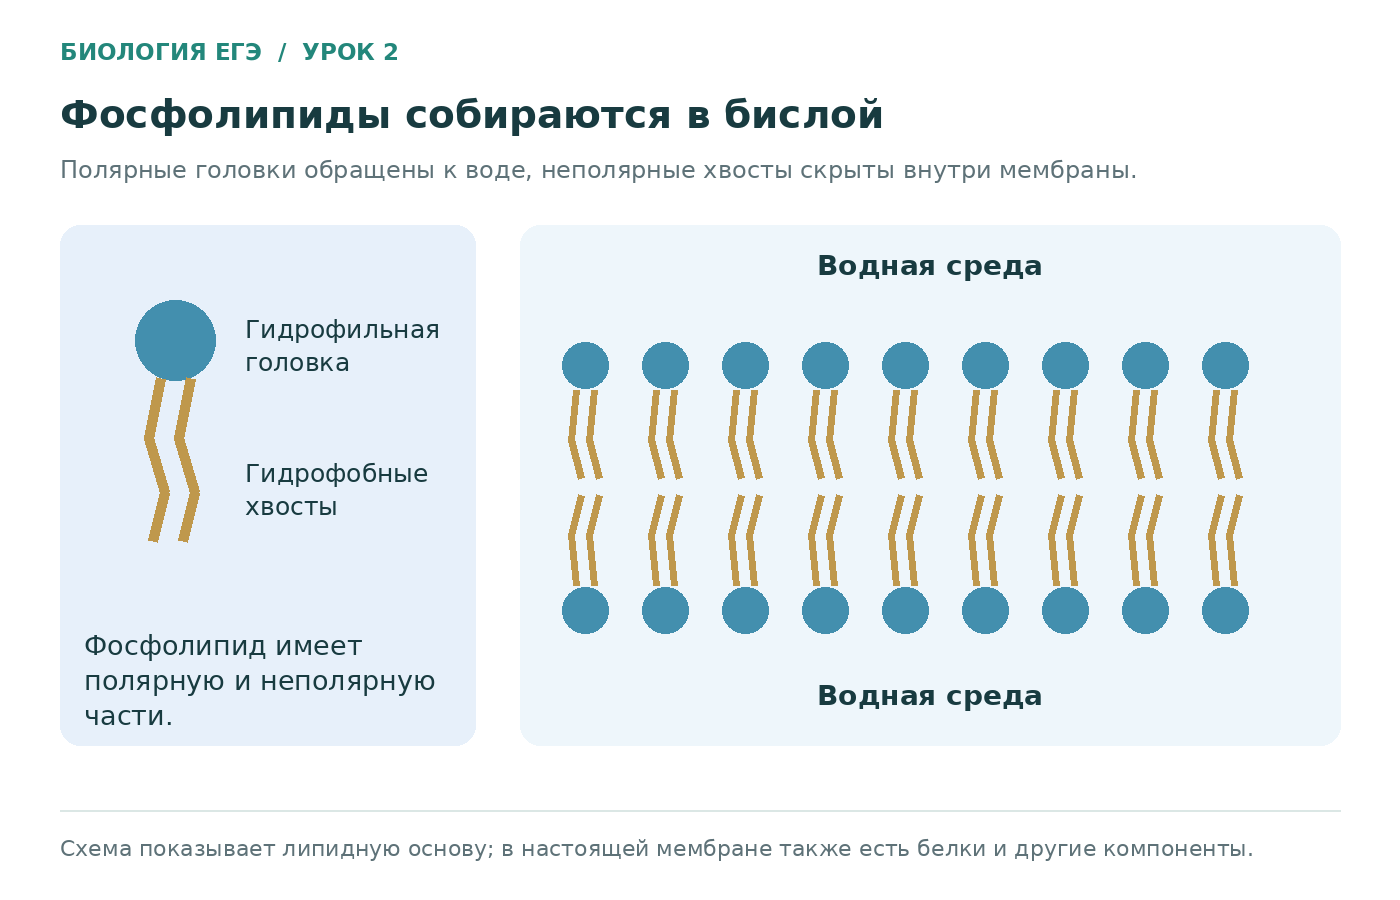
Триацилглицеролы образованы глицерином и тремя жирными кислотами и служат концентрированным энергетическим запасом. Фосфолипид имеет гидрофильную головку и гидрофобные хвосты; в воде такие молекулы самопроизвольно формируют бислой. Стероиды имеют характерную систему колец; холестерин регулирует свойства мембран и служит предшественником ряда гормонов.
Насыщенные жирные кислоты не имеют двойных связей в углеводородной цепи, ненасыщенные содержат одну или несколько. Изгибы в области двойных связей мешают плотной упаковке и обычно повышают текучесть. На экзамене связывайте химическую особенность со свойством мембраны или жира.
Класс | Ключевая особенность | Функции |
|---|---|---|
Триацилглицеролы | Глицерин + 3 жирные кислоты | Запас энергии, теплоизоляция, защита |
Фосфолипиды | Амфифильная молекула | Основа мембран |
Стероиды | Система углеродных колец | Гормоны, регуляция мембран |
Воски | Гидрофобные сложные эфиры | Защитные водоотталкивающие покрытия |
70+ · Основное
Фосфолипид амфифилен: полярная головка взаимодействует с водой, неполярные хвосты избегают её. Это обеспечивает самосборку бислоя.
09. Белки: уровни структуры и функции
70+
Белок — полимер аминокислот, соединённых пептидными связями. Каждая аминокислота имеет аминогруппу, карбоксильную группу и радикал. Именно радикалы различаются по размеру, заряду, полярности и способности образовывать взаимодействия.
Первичная структура — последовательность аминокислот. Вторичная поддерживается главным образом водородными связями между группами полипептидного остова. Третичная возникает при взаимодействии радикалов и определяет пространственную форму одной цепи. Четвертичная есть у белков из нескольких субъединиц.
Функции белков разнообразны: каталитическая, структурная, транспортная, двигательная, рецепторная, защитная и регуляторная. Ответ «белки нужны для строения» слишком общий. Назовите молекулу и механизм: гемоглобин обратимо связывает кислород; антитело узнаёт антиген; коллаген образует прочные волокна; канал создаёт гидрофильный путь через мембрану.
Денатурация — нарушение вторичной, третичной и/или четвертичной структуры без обязательного разрушения первичной. Причинами могут быть высокая температура, крайние pH, органические растворители, соли тяжёлых металлов. Ренатурация возможна не всегда: после агрегации или химического повреждения исходная форма может не восстановиться.
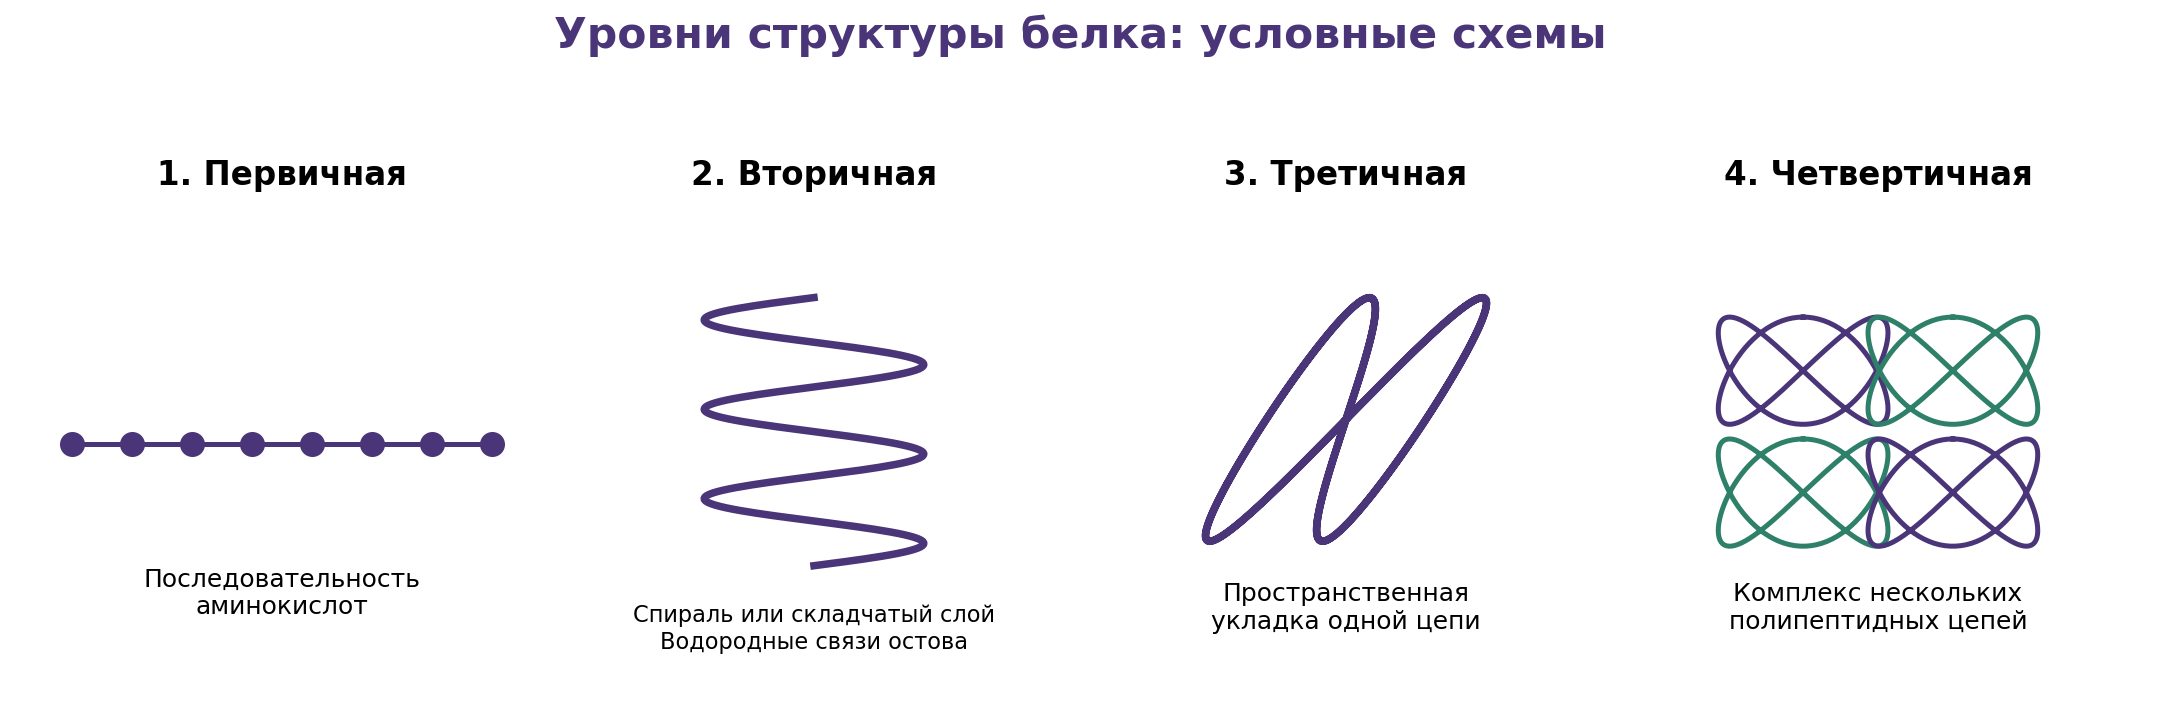
Рисунок. Уровни структуры белка
Уровень | Что описывает | Основные стабилизирующие взаимодействия |
|---|---|---|
Первичный | Последовательность аминокислот | Пептидные связи |
Вторичный | Локальная укладка цепи | Водородные связи остова |
Третичный | Форма одной цепи | Гидрофобные, ионные, водородные, дисульфидные взаимодействия |
Четвертичный | Комплекс субъединиц | Те же типы взаимодействий между цепями |
70+ · Основное
Денатурация меняет пространственную организацию и функцию белка; гидролиз разрушает пептидные связи и первичную структуру.
10. Ферменты: катализ и специфичность
80+
Фермент ускоряет реакцию, снижая энергию активации, но не расходуется в её суммарном уравнении и не изменяет конечное положение химического равновесия. Субстрат связывается с активным центром, формируется фермент-субстратный комплекс, затем продукты освобождаются.
Специфичность определяется совместимостью формы, зарядов и химических групп активного центра с субстратом. Модель «ключ — замок» полезна как первое приближение, но индуцированное соответствие точнее: связывание субстрата может менять конформацию фермента.
С повышением температуры скорость сначала растёт из-за увеличения частоты столкновений, затем после оптимума падает из-за нарушения структуры белка. Зависимость от pH тоже часто имеет оптимум. При росте концентрации субстрата скорость выходит на плато: активные центры заняты, и ограничивающим фактором становится количество фермента.
Ингибитор может конкурировать с субстратом за активный центр или связываться в другом участке и изменять форму белка. Кофакторы — небелковые компоненты, необходимые некоторым ферментам; ими могут быть ионы металлов или органические производные витаминов.
Изменение активности фермента объясняют цепочкой: фактор → молекулярное изменение → изменение формы активного центра или частоты образования комплекса → изменение скорости реакции.
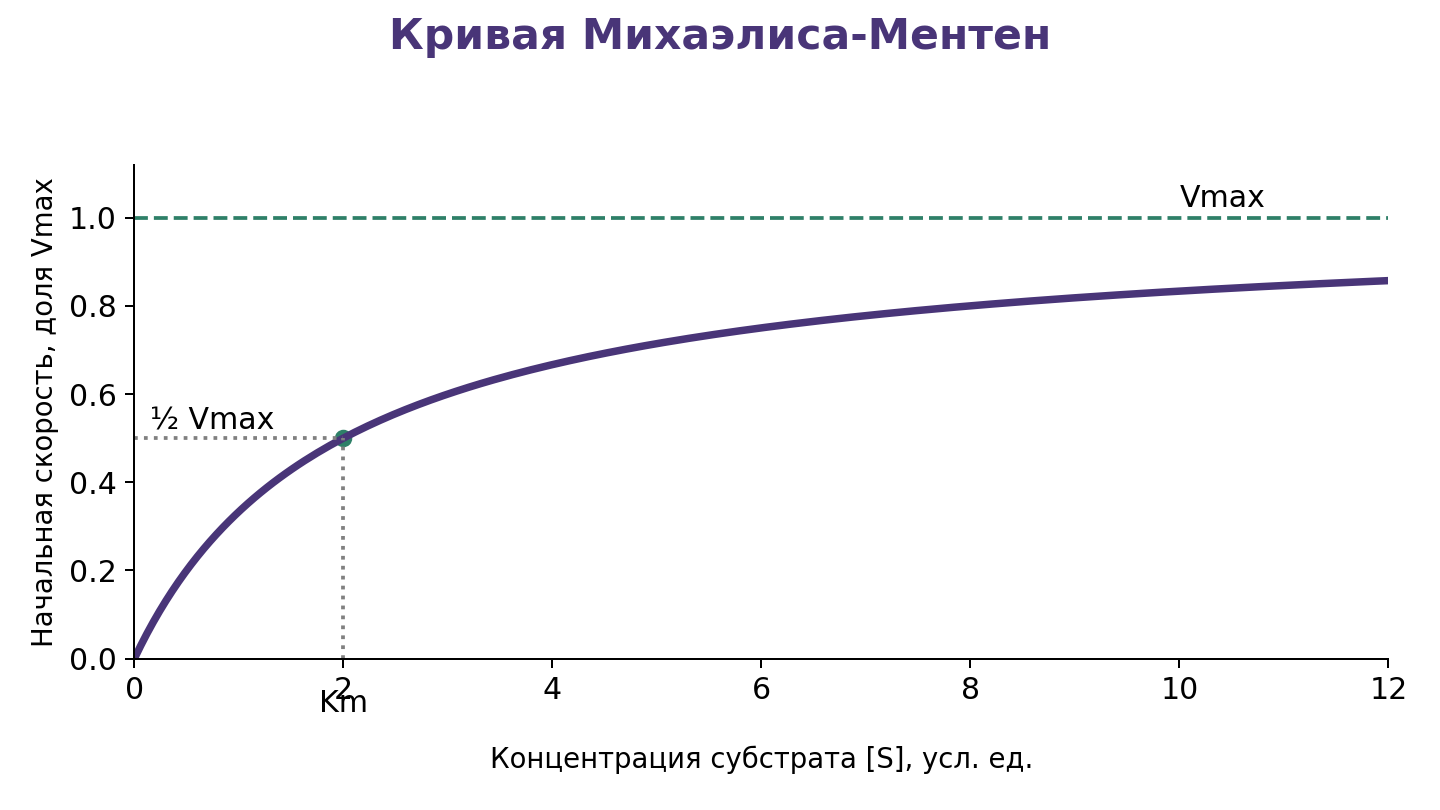
Рисунок. Зависимость скорости ферментативной реакции от концентрации субстрата
80+ · Основное
Фермент снижает энергию активации. Факторы меняют скорость через столкновения, насыщение или сохранность пространственной структуры активного центра.
11. Нуклеотиды и нуклеиновые кислоты
70+
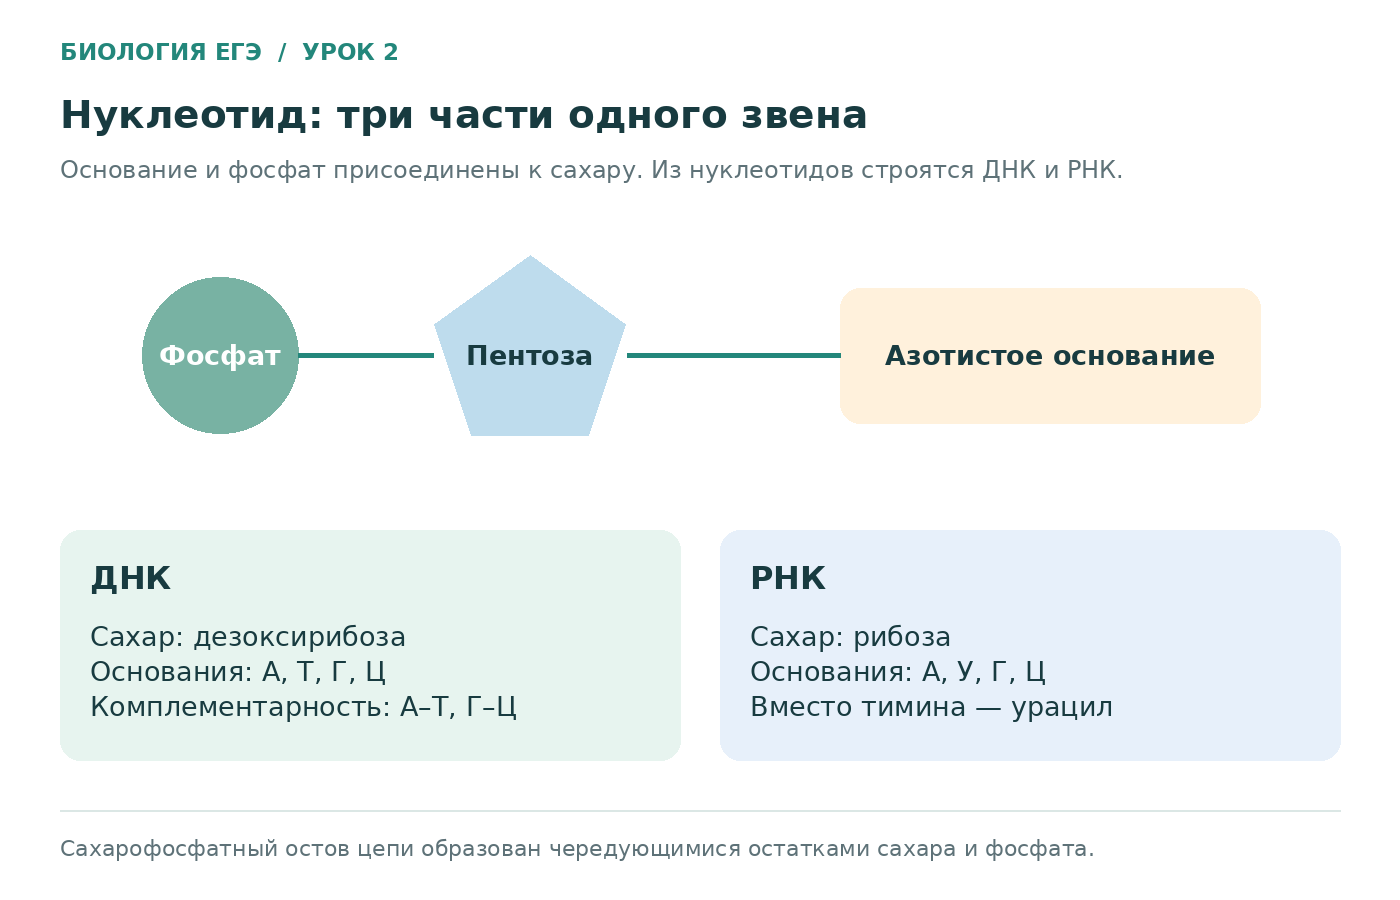
Нуклеотид состоит из азотистого основания, пентозы и остатка фосфорной кислоты. В ДНК сахар — дезоксирибоза, в РНК — рибоза. Основания ДНК: аденин, гуанин, цитозин и тимин; в РНК вместо тимина используется урацил.
Нуклеотиды одной цепи соединены фосфодиэфирными связями. Две цепи ДНК антипараллельны и удерживаются водородными связями между комплементарными основаниями: A–T и G–C. Между G и C условно учитывают три водородные связи, между A и T — две.
В двуцепочечной ДНК A = T и G = C, но A не обязано равняться G. Комплементарность оснований позволяет рассчитывать их относительное и абсолютное содержание.
Признак | ДНК | РНК |
|---|---|---|
Пентоза | Дезоксирибоза | Рибоза |
Характерное основание | Тимин | Урацил |
Число цепей в типичной школьной модели | Две | Одна |
Главная роль | Хранение наследственной информации | Реализация информации и другие функции |
70+ · Основное
Нуклеотид = основание + пентоза + фосфат. Для двуцепочечной ДНК: A = T, G = C, сумма всех оснований — 100%.
12. АТФ и энергетическое сопряжение
80+
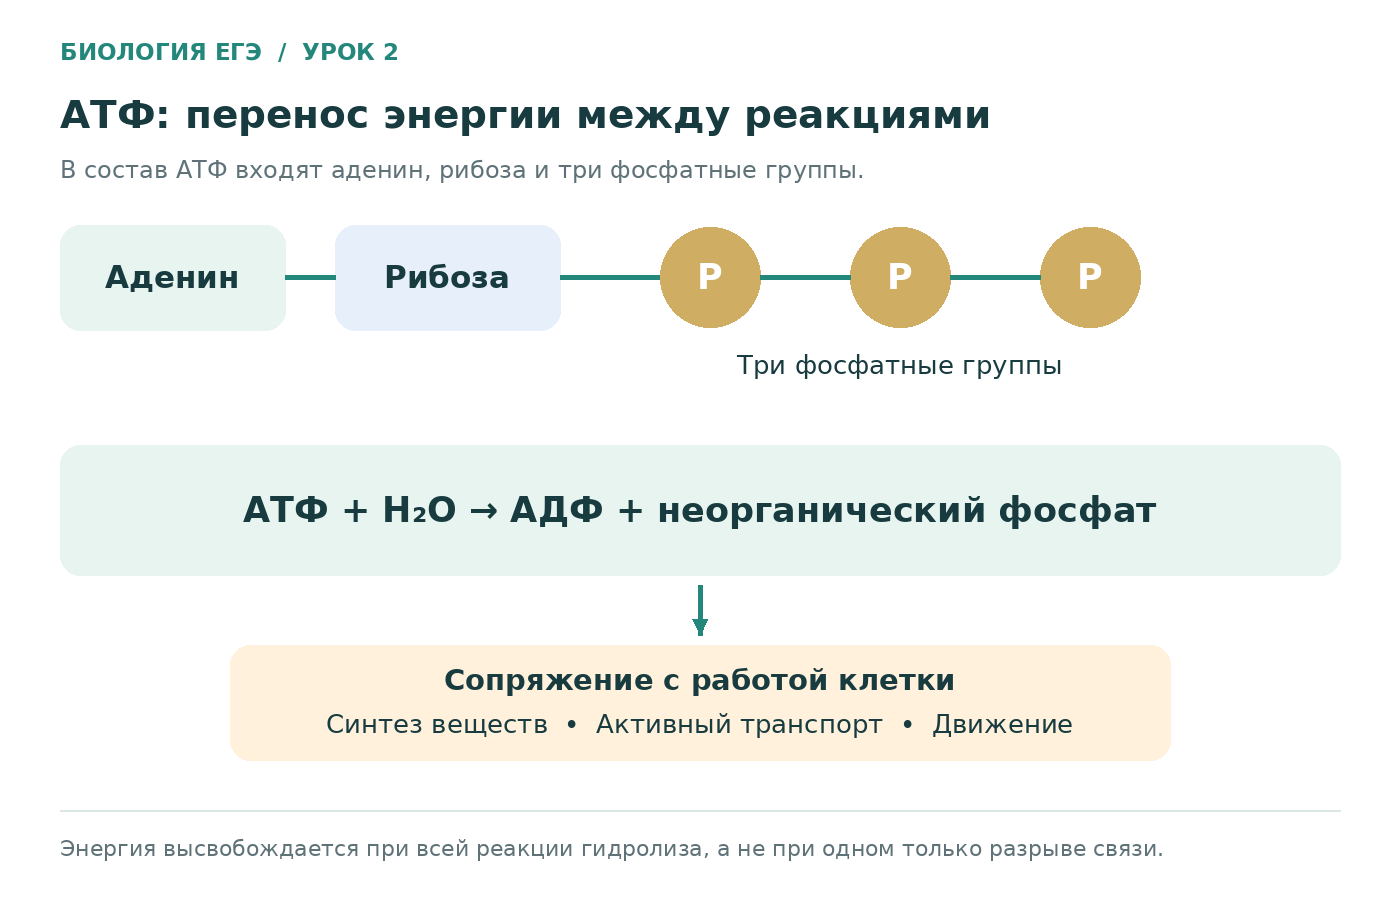
АТФ — нуклеотид, состоящий из аденина, рибозы и трёх фосфатных групп. При гидролизе АТФ образуются АДФ и неорганический фосфат, а изменение свободной энергии может быть использовано клеткой. Корректнее говорить, что энергия высвобождается в результате всей реакции гидролиза и образования более устойчивых продуктов, а не «хранится внутри одной связи как в пружине».
Клетка сопрягает энергетически выгодный гидролиз АТФ с невыгодными процессами: синтезом веществ, активным транспортом, движением моторных белков. Фосфат может временно переноситься на субстрат или белок, меняя его реакционную способность или конформацию.
Запас АТФ невелик и постоянно обновляется. Синтез идёт при субстратном и окислительном фосфорилировании, а у фотосинтезирующих организмов — также при фотофосфорилировании. Подробный механизм энергетического обмена начинается в уроке 5.
АТФ (аденозинтрифосфат) состоит из аденина, рибозы и трёх последовательно связанных фосфатных остатков. Аденин с рибозой образует аденозин. При гидролизе концевого фосфатного остатка образуются АДФ и неорганический фосфат; реакция может быть сопряжена с клеточной работой.
80+ · Основное
АТФ — универсальный непосредственный переносчик энергии и фосфатной группы. Она связывает энергетически выгодные и невыгодные процессы.
13. Качественные реакции и логика эксперимента
80+
Качественная реакция обнаруживает определённую химическую группу или класс веществ по наблюдаемому признаку: цвету, осадку, газу. Она не всегда идентифицирует конкретную молекулу. Например, положительная биуретовая реакция указывает на пептидные связи, но не на название белка.
Нужны положительный и отрицательный контроли. Положительный показывает, что реактив и процедура способны дать ожидаемый результат на известном образце. Отрицательный показывает фон и помогает убедиться, что цвет не появляется без искомого вещества.
При сравнении интенсивности окраски стандартизируют объём, концентрацию реактива, температуру, время и освещение. Если измерение проводится «на глаз», вывод должен быть осторожным. Для количественной оценки используют прибор и калибровочную зависимость.
| Проба | Положительный результат |
|---|---|
Крахмал + раствор йода | Синее или сине-фиолетовое окрашивание |
Белок + биуретовый реактив | Фиолетовое окрашивание |
Восстанавливающий сахар + реактив Бенедикта, нагревание | Окрашенный осадок, вплоть до кирпично-красного |
Липиды + Судан III | Окрашивание липидной фазы в оранжево-красный цвет |
Проба | Что обнаруживает | Наблюдаемый результат |
|---|---|---|
Йодная | Крахмал | Сине-чёрное окрашивание |
Биуретовая | Пептидные связи | Фиолетовое окрашивание |
На восстанавливающие сахара | Восстанавливающие группы | Цветной осадок после нагревания |
Эмульсионная | Липиды | Мутная белая эмульсия |
80+ · Основное
Контроли отвечают на разные вопросы: положительный — работает ли метод; отрицательный — возникает ли сигнал без исследуемого вещества.