

Сцепление генов, кроссинговер, генетические карты и наследование признаков, связанных с половыми хромосомами.
Содержание урока
- Хромосомная теория наследственности: гены имеют адрес · 70+
- Кроссинговер: когда и между какими хроматидами происходит обмен · 70+
- Фаза сцепления и анализирующее скрещивание · 80+
- Частоты гамет при известной рекомбинации · 80+
- Трёхточечное картирование: порядок генов и двойные кроссоверы · 90+
- Определение пола: гомогаметный и гетерогаметный пол · 70+
- X-сцепленное рецессивное и доминантное наследование · 80+
- Y-сцепленное наследование · 70+
- Псевдоаутосомные участки X и Y · 90+
- Ограничения картирования и комбинированные задачи · 90+
- Полное и неполное сцепление. Почему наблюдаемые классы бывают асимметричны · 80+
- Двойные кроссоверы, коэффициент совпадения и интерференция · 90+
- Сложные задачи по наследованию, сцепленному с полом · 90+
- Как спроектировать картирующее скрещивание и проверить вывод · 90+
- Инактивация X-хромосомы, тельце Барра и клеточная мозаичность · 90+
- Сцепленные гены в обычном скрещивании: от гамет к вероятности потомка · 90+
- Как мейоз объясняет законы наследования и исключения из них · 70+
- От события кроссинговера к доле рекомбинантных гамет · 80+
- Трёхточечная задача как таблица восьми гамет: второй полный разбор · 90+
- Псевдоаутосомные области X и Y: почему возможна передача отец — сын · 80+
- Комбинированные вероятности: сцепленный блок, пол и отдельный локус · 90+
- Финальная проверка готовности · 90+
70+ — обязательное ядро; 80+ — объяснение механизмов; 90+ — углубление и перенос знаний. Это ориентиры сложности, а не обещание экзаменационного балла.
Расчёты сцепления требуют знания фазы аллелей и частоты рекомбинации. В учебных моделях предполагаются полная пенетрантность и одинаковая жизнеспособность генотипов, если в условии не указано иное.
01. Хромосомная теория наследственности: гены имеют адрес · 70+
Хромосомная теория связала законы наследования с поведением хромосом в мейозе. Гены расположены в хромосомах линейно и занимают определённые локусы. Аллели одного гена находятся в одинаковых локусах гомологичных хромосом, поэтому расходятся при расхождении гомологов.
- Гены находятся в хромосомах; каждый ген занимает определённый локус.
- Гены одной хромосомы образуют группу сцепления и имеют тенденцию наследоваться совместно.
- Число групп сцепления обычно соответствует гаплоидному числу хромосом n.
- Кроссинговер между гомологичными хромосомами создаёт рекомбинантные сочетания аллелей.
- Чем дальше друг от друга расположены два локуса, тем выше вероятность обмена между ними, пока наблюдаемая рекомбинация не приблизится к 50%.
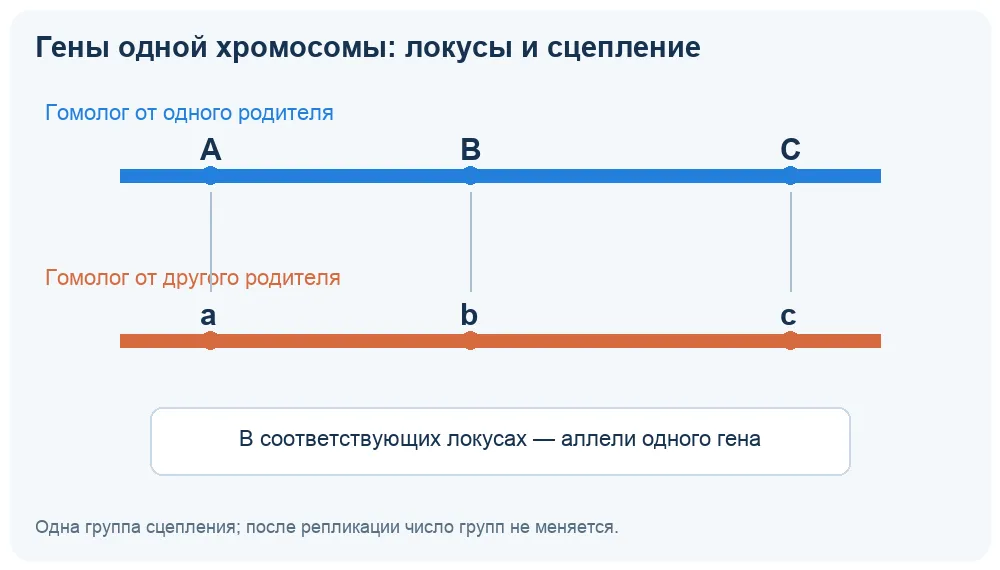
Независимое расхождение из третьего закона Менделя применимо к генам в разных хромосомах или к настолько удалённым локусам одной хромосомы, что наблюдаемая доля рекомбинантов достигает 50%. Факт нахождения в одной хромосоме сам по себе не гарантирует заметного сцепления в потомстве.
Ловушка ЕГЭ. Группа сцепления - не пара аллелей и не набор доминантных генов. Это все гены одной хромосомы.
02. Кроссинговер: когда и между какими хроматидами происходит обмен · 70+
В профазе I мейоза гомологичные хромосомы конъюгируют и образуют бивалент, содержащий четыре хроматиды. Обмен происходит между несестринскими хроматидами гомологичных хромосом. Сестринские хроматиды до обмена являются копиями одной хромосомы и не создают новых сочетаний аллелей при взаимном обмене одинаковыми участками.
Разрыв и воссоединение происходят в соответствующих участках. После одного кроссинговера в биваленте две хроматиды остаются родительскими, а две становятся рекомбинантными. Число генов и хромосом при этом не меняется: меняется сочетание аллелей в одной хроматиде.
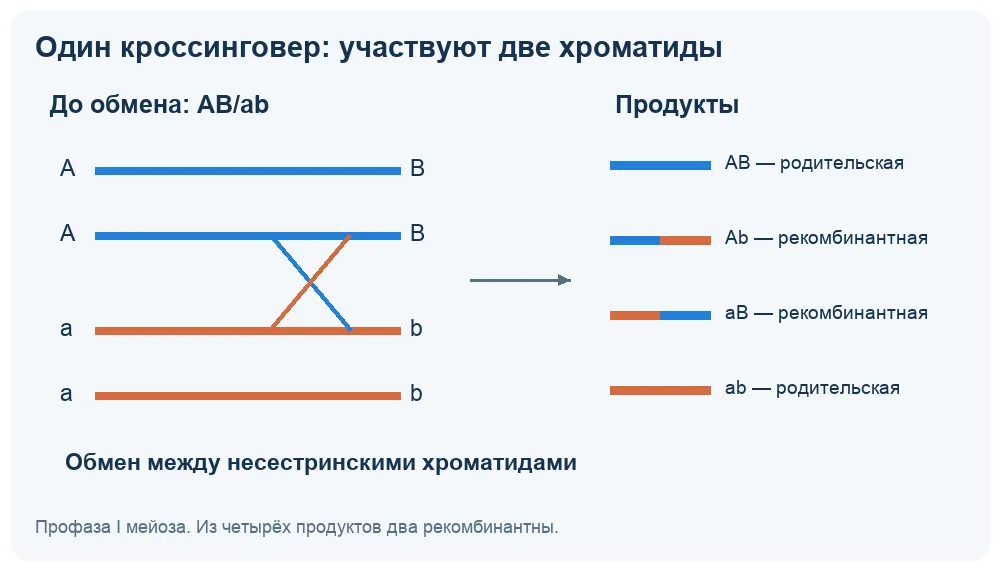
- Родительские гаметы сохраняют исходные сочетания аллелей в хромосомах родителя.
- Рекомбинантные гаметы несут новые сочетания аллелей, появившиеся вследствие кроссинговера.
- Частота рекомбинации описывает долю рекомбинантных гамет или потомков тесткросса, а не долю клеток, в которых произошёл обмен.
Ловушка ЕГЭ. Кроссинговер не создаёт новые аллели и не является мутацией. Он перекомбинирует уже существующие варианты генов.
03. Фаза сцепления и анализирующее скрещивание · 80+
Запись AaBb не показывает, в каких хромосомах находятся аллели. При цис-фазе, или фазе сочетания, дигетерозигота записывается AB/ab. При транс-фазе, или фазе отталкивания, запись имеет вид Ab/aB. Эта информация определяет, какие гаметы будут родительскими.
AB/ab: родительские AB и ab; рекомбинантные Ab и aB
Ab/aB: родительские Ab и aB; рекомбинантные AB и ab
Анализирующее скрещивание проводят с двойной рецессивной особью aabb. Она образует только гаметы ab, поэтому генотип и фенотип каждого потомка непосредственно отражают гамету дигетерозиготы. Два наиболее многочисленных взаимных класса обычно родительские, два меньших - рекомбинантные.
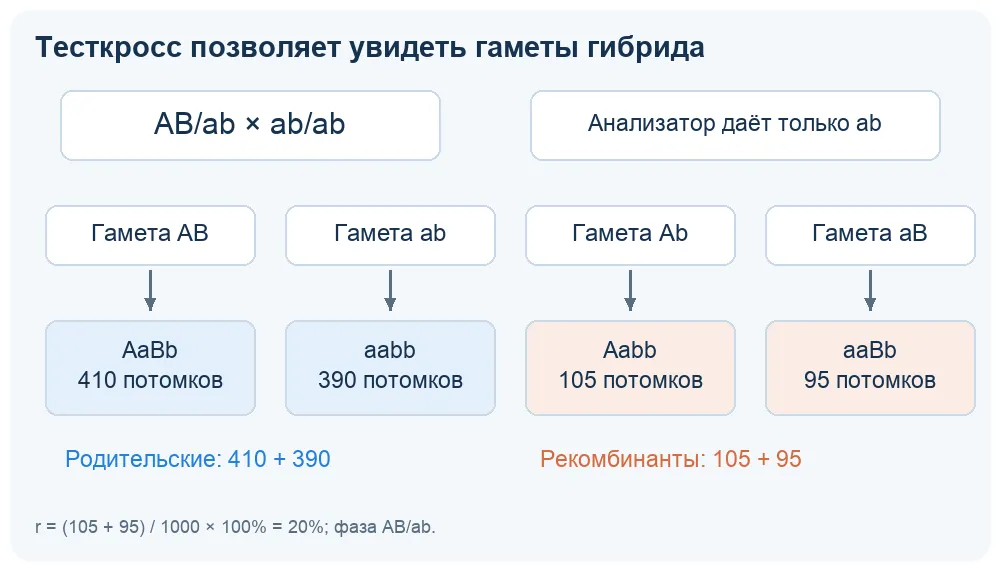
r = (число рекомбинантных потомков / общее число потомков) × 100%
Разобранная задача. Двухточечное картирование
Условие. В тесткроссе получено 410 AB, 390 ab, 105 Ab и 95 aB потомков. Определите фазу дигетерозиготы и расстояние между генами.
- Самые многочисленные взаимные классы AB и ab - родительские. Следовательно, фаза сцепления AB/ab.
- Рекомбинантные классы Ab и aB: 105 + 95 = 200.
- Общее число потомков: 410 + 390 + 105 + 95 = 1000.
- r = 200/1000 × 100% = 20%.
Ответ. Фаза AB/ab; расстояние между локусами около 20 сМ.
Для близких локусов 1% рекомбинантных гамет приблизительно соответствует 1 сантиморгану. Это генетическое, а не физическое расстояние: одинаковое число пар нуклеотидов может иметь разную частоту кроссинговера в разных областях хромосомы.
Ловушка ЕГЭ. Нельзя считать каждый малый класс отдельным процентом расстояния. В двухточечном тесткроссе складывают оба взаимных рекомбинантных класса.
04. Частоты гамет при известной рекомбинации · 80+
Если частота рекомбинации равна r, суммарная доля двух рекомбинантных гамет равна r, а суммарная доля двух родительских - 1 - r. В обычной модели взаимные продукты каждого типа образуются поровну.
каждая родительская гамета = (1 - r)/2; каждая рекомбинантная = r/2
Разобранная задача. Гаметы в транс-фазе
Условие. Дигетерозигота имеет фазу Ab/aB. Частота рекомбинации 24%. Найдите частоты четырёх типов гамет.
- Рекомбинантные гаметы для транс-фазы - AB и ab. Их суммарная доля 24%, значит каждая по 12%.
- Родительские гаметы Ab и aB суммарно составляют 76%, значит каждая по 38%.
- Проверка: 38 + 38 + 12 + 12 = 100%.
Ответ. Ab - 38%, aB - 38%, AB - 12%, ab - 12%.
При полном сцеплении в рассматриваемой выборке рекомбинантные гаметы не обнаруживаются. Это не означает, что обмен физически невозможен всегда: локусы могут быть очень близки, выборка мала или кроссинговер отсутствует у данного пола и вида.
Проверка здравого смысла. В стандартной модели ожидаемая доля рекомбинантных гамет между двумя локусами не превышает 50%. Наблюдаемые 60% требуют проверки фазы, объёма выборки, отбора и вычислений: выборочная доля может отклоняться от теоретической.
05. Трёхточечное картирование: порядок генов и двойные кроссоверы · 90+
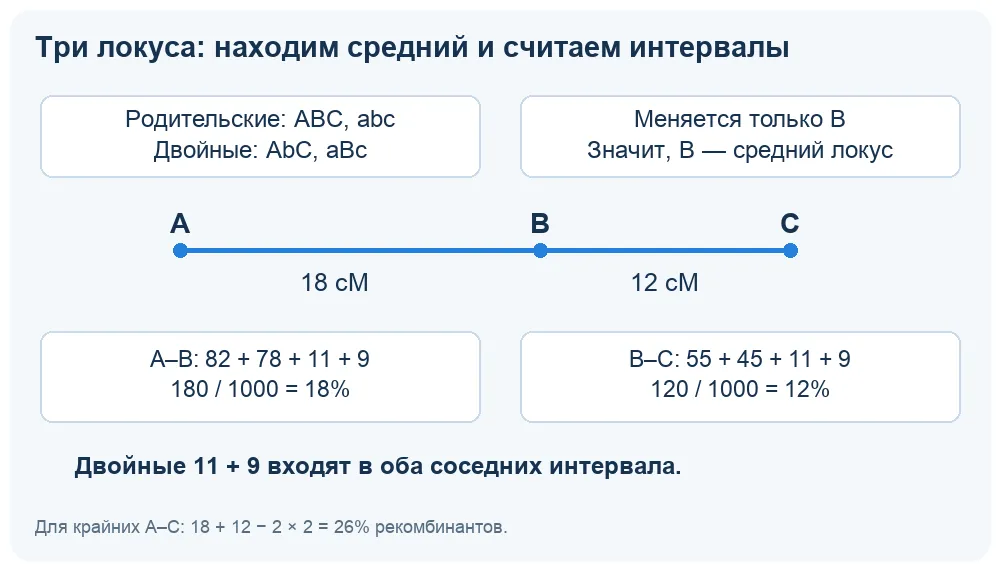
При анализе трёх генов образуется восемь классов потомков. Два самых многочисленных взаимных класса обычно родительские, два самых малочисленных - двойные кроссоверы. Чтобы найти средний ген, сравнивают родительский класс с наиболее похожим двойным: аллель, положение которого изменилось относительно двух крайних, принадлежит среднему локусу.
Расстояние каждого интервала рассчитывают отдельно. В интервал включают два класса одиночного кроссинговера этого интервала и оба класса двойного кроссинговера. Двойной обмен рекомбинирует каждый из двух интервалов, поэтому должен учитываться в обоих расчётах.
Разобранная задача. Полное трёхточечное картирование
Условие. В тесткроссе получено: 366 ABC, 354 abc, 82 Abc, 78 aBC, 55 ABc, 45 abC, 11 AbC и 9 aBc. Установите порядок генов и расстояния между соседними генами.
- Общее число потомков равно 1000. Самые большие классы ABC и abc - родительские; самые малые AbC и aBc - двойные кроссоверы.
- Сравниваем ABC с AbC: изменился только B. Сравниваем abc с aBc: снова изменился B. Значит B - средний ген, порядок A-B-C.
- Рекомбинанты интервала A-B: Abc, aBC, AbC и aBc. Их 82 + 78 + 11 + 9 = 180; расстояние A-B = 18 сМ.
- Рекомбинанты интервала B-C: ABc, abC, AbC и aBc. Их 55 + 45 + 11 + 9 = 120; расстояние B-C = 12 сМ.
- Картографическое расстояние между крайними генами по сумме интервалов равно 30 сМ.
Ответ. Порядок A-B-C; A-B = 18 сМ, B-C = 12 сМ, карта A-18-B-12-C.
Наблюдаемая рекомбинация между крайними A и C может быть меньше 30%: двойной кроссинговер меняет оба интервала, но восстанавливает родительское сочетание крайних маркеров. Поэтому простое двухточечное картирование недооценивает большие расстояния.
Расширение 90+. Если обмены в двух интервалах независимы, ожидаемую долю двойных кроссоверов оценивают как r1 × r2. Сравнение наблюдаемой и ожидаемой долей описывает интерференцию, но в ЕГЭ важнее правильно включить двойные классы в оба интервала.
06. Определение пола: гомогаметный и гетерогаметный пол · 70+
Пол может определяться половыми хромосомами или плоидностью. Гомогаметный пол образует один тип гамет по половой хромосоме, гетерогаметный - два типа. Нельзя переносить человеческую систему XX/XY на все организмы.
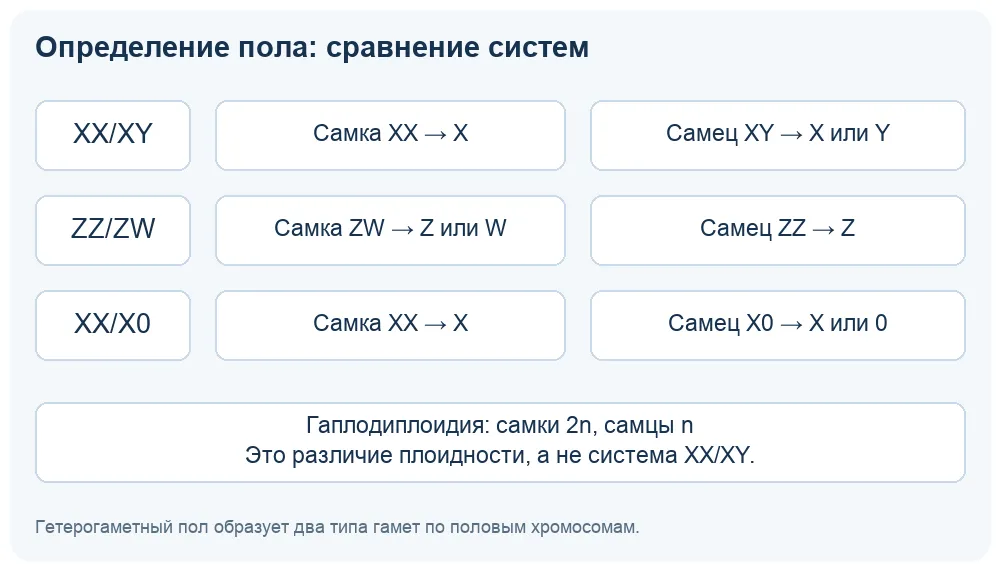
| Система | Самки | Самцы | Пример |
|---|---|---|---|
| XX/XY | XX, гомогаметные | XY, гетерогаметные | млекопитающие |
| ZZ/ZW | ZW, гетерогаметные | ZZ, гомогаметные | птицы, многие бабочки |
| XX/X0 | XX, гомогаметные | X0, гетерогаметные | некоторые насекомые |
| Гаплодиплоидия | диплоидные, 2n | гаплоидные, n | пчёлы, осы; иная система определения пола |
В системе XX/XY яйцеклетки несут только X, а сперматозоиды - X или Y. Поэтому хромосомный пол потомка определяется типом оплодотворившего сперматозоида. Это вероятностный процесс для каждого оплодотворения.
Ловушка ЕГЭ. В системе ZZ/ZW гетерогаметна самка, а не самец. Буквы хромосом важнее бытового правила «мужской пол гетерогаметен».
07. X-сцепленное рецессивное и доминантное наследование · 80+
Гены X-специфической области не имеют гомологичной копии на Y. Поэтому мужчина XY гемизиготен по такому локусу: один рецессивный аллель на X сразу определяет фенотип. Женщине XX для рецессивного фенотипа обычно нужны две копии соответствующего аллеля.
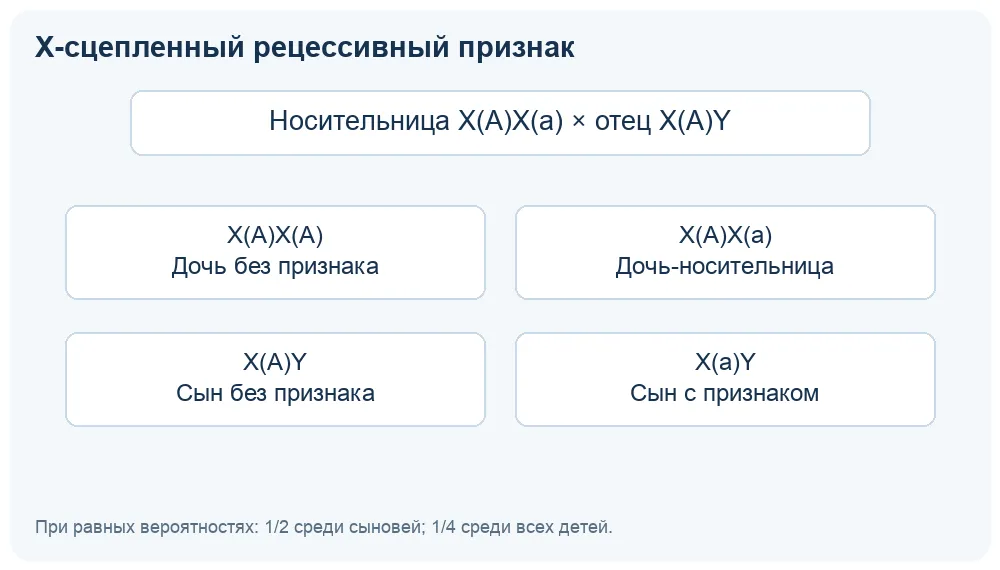
Разобранная задача. Риск больного сына
Условие. Женщина-носительница XAXa и здоровый мужчина XAY планируют детей. Признак рецессивный X-сцепленный. Найдите вероятность больного сына среди сыновей и среди всех детей.
- Сын получает Y от отца и один из X матери.
- Вероятность получить Xa от матери равна 1/2, поэтому среди сыновей больна половина.
- Среди всех детей одновременно нужны два события: ребёнок мужского пола (1/2) и передача Xa (1/2).
Ответ. 1/2 среди сыновей и 1/4 среди всех детей при равной вероятности пола.
- Передачи X-специфического аллеля от отца к сыну нет: сын получает от отца Y.
- Больной отец передаёт свой X всем дочерям.
- При X-сцепленном доминантном признаке больной отец и здоровая мать имеют всех дочерей с признаком и всех сыновей без него при полной пенетрантности.
- Для рецессивного признака больная дочь обычно должна получить соответствующий аллель и от отца, и от матери.
Ловушка ЕГЭ. Фраза «болеют только мужчины» не доказывает X-сцепленную модель. Нужны направление передачи, генотипы родителей и отсутствие отец-сын для X-специфического локуса.
08. Y-сцепленное наследование · 70+
Y-сцепленный, или голандрический, локус находится в Y-специфической области. Он присутствует только у носителей Y и передаётся по прямой мужской линии. При полном проявлении больной отец передаёт аллель всем биологическим сыновьям и ни одной дочери.
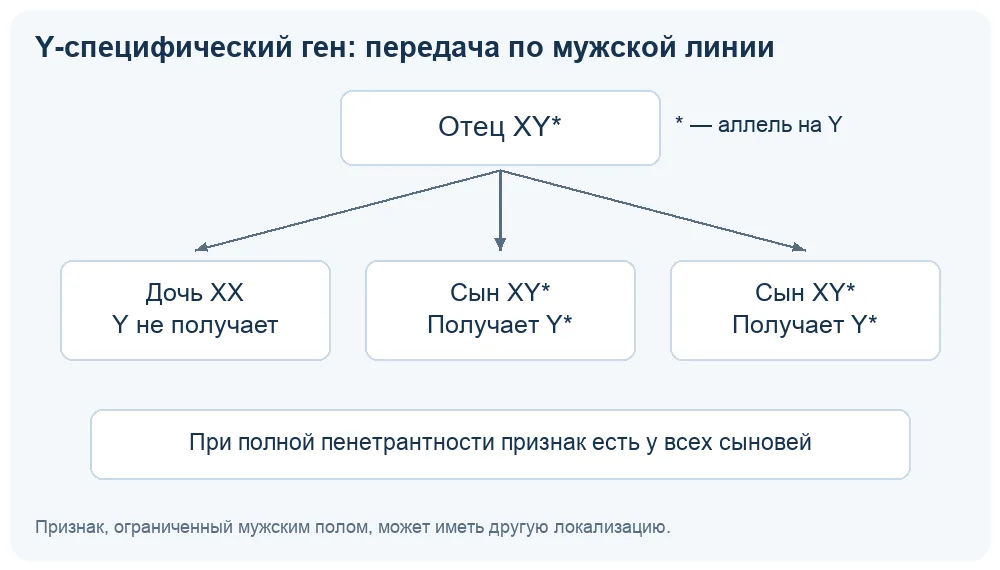
Y-сцепленную модель нужно отличать от аутосомного признака, ограниченного мужским полом. Аутосомный аллель может передаваться через фенотипически здоровых женщин и не обязан переходить от больного отца каждому сыну. Для Y-сцепленного локуса такая мужская линия обязательна при полной пенетрантности.
Проверка модели. Если у больного отца есть здоровый сын или больная дочь, простая полностью пенетрантная Y-сцепленная модель не объясняет данные.
09. Псевдоаутосомные участки X и Y · 90+
Псевдоаутосомные участки PAR - гомологичные области X- и Y-хромосом. В мужском мейозе X и Y конъюгируют по этим областям и могут обмениваться участками. Поэтому ген PAR представлен у мужчины двумя копиями: одна находится на X, другая - на Y; обычная гемизиготность X-специфических генов здесь неприменима.
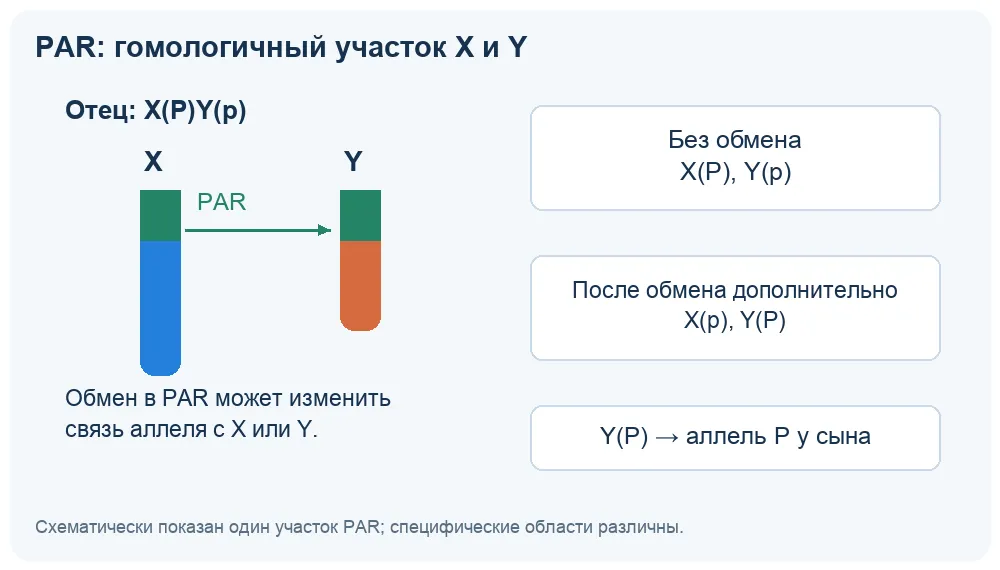
Аллель PAR может перейти с X на Y при кроссинговере и затем попасть от отца к сыну. Такая передача не доказывает Y-сцепление. В отличие от Y-специфического гена, псевдоаутосомный локус встречается у обоих полов и способен передаваться через X по женской линии.
Разобранная задача. Почему возможна передача отец-сын
Условие. У мужчины аллель P псевдоаутосомного локуса находится на X, а аллель p - на Y. Какие типы сперматозоидов возможны без обмена и после кроссинговера между локусом и границей PAR?
- Без обмена сохраняются родительские сочетания: XP и Yp.
- После кроссинговера возможны рекомбинантные Xp и YP.
- Сперматозоид YP при оплодотворении несущей X яйцеклетки даёт сына, получившего P от отца.
Ответ. Без обмена XP и Yp; после обмена дополнительно Xp и YP. Аллель P может перейти от отца сыну на Y.
Ловушка ЕГЭ. Передача отец-сын исключает только X-специфическую локализацию. Она совместима с Y-сцепленным, псевдоаутосомным и аутосомным наследованием.
10. Ограничения картирования и комбинированные задачи · 90+
Доля рекомбинантов - наблюдаемый результат, на который влияют не только расстояние, но и множественные кроссоверы, жизнеспособность классов, ошибки классификации, пол и вид организма. У удалённых локусов чётное число обменов может восстановить родительское сочетание маркеров, поэтому частота рекомбинации насыщается около 50%.
- Если четыре класса тесткросса близки к 25%, гены могут находиться в разных хромосомах или быть далеко друг от друга в одной.
- Различить эти варианты можно цитогенетической или молекулярной локализацией, либо картированием с промежуточными маркерами.
- Неравная жизнеспособность потомков искажает частоты классов и может имитировать более тесное сцепление.
- Частота кроссинговера может различаться у полов, поэтому генетические карты самцов и самок не всегда совпадают.
Разобранная задача. Сцепление плюс независимый X-локус
Условие. Дигетерозигота AB/ab образует 10% рекомбинантных гамет. Независимый аллель Xa передаётся с вероятностью 1/2. Найдите вероятность гаметы AbXa.
- Ab - один из двух взаимных рекомбинантных типов, поэтому P(Ab) = 10%/2 = 5%.
- X-локус наследуется независимо: P(Xa) = 1/2.
- Для совместного события вероятности перемножаются: 0,05 × 0,5 = 0,025.
Ответ. 2,5%.
Алгоритм сложной задачи. Сначала определите фазы и гаметы сцепленного блока, затем отдельно решите половые хромосомы или независимые аутосомы. Объединяйте вероятности только после проверки независимости блоков.
11. Полное и неполное сцепление. Почему наблюдаемые классы бывают асимметричны · 80+
При полном сцеплении в рассматриваемом мейозе обнаруживаются только родительские сочетания. При неполном сцеплении появляются рекомбинантные классы. Термины описывают наблюдение в конкретном контексте: очень близкие локусы могут выглядеть полностью сцепленными в небольшой выборке, хотя редкий кроссинговер возможен.
В идеальной двухточечной модели два родительских класса взаимны и близки по численности; два рекомбинантных также взаимны и близки. Сильная асимметрия требует объяснения. Она может возникнуть из-за случайности малой выборки, различной жизнеспособности генотипов, ошибок определения фенотипа, неравной передачи аллелей или различий между полами.
| Картина тесткросса | Первое предположение | Что проверить |
|---|---|---|
| 2 больших + 2 малых взаимных класса | неполное сцепление | фазу и сумму рекомбинантов |
| 4 класса около 25% | независимость или r около 50% | локализацию генов |
| 2 класса, рекомбинантов нет | полное сцепление или малая выборка | увеличить потомство |
| взаимные классы резко различаются | жизнеспособность или ошибка учёта | считать ранние стадии и повторить |
Разобранная задача. Почему редкий класс не всегда рекомбинантный
Условие. В тесткроссе один фенотипический класс встречается значительно реже остальных. Можно ли сразу считать его рекомбинантным?
- Рекомбинацию определяют по двум взаимным классам, а не по одному редкому фенотипу.
- Нужно установить исходную фазу или найти два наиболее многочисленных взаимных класса.
- Если один из взаимных партнёров не редок, возможно снижение жизнеспособности конкретного генотипа.
- Полезно сравнить числа на стадии зигот или семян и после развития.
Ответ. Нет. Нужны взаимность классов, фаза сцепления и проверка жизнеспособности.
В некоторых видах кроссинговер отсутствует у одного пола. Классический пример в школьной генетике - отсутствие рекомбинации у самцов дрозофилы. Поэтому одинаковая пара локусов способна давать разные результаты в зависимости от того, кто из родителей является дигетерозиготой.
Ловушка ЕГЭ. Не переносите частоту рекомбинации из одного пола или вида на другой без условия. Генетическая карта отражает частоту мейотических событий в изученной системе.
12. Двойные кроссоверы, коэффициент совпадения и интерференция · 90+
При трёх локусах два обмена могут произойти в соседних интервалах одной пары хроматид. Такие двойные кроссоверы создают самые редкие взаимные классы в типичной задаче. Они особенно важны, потому что восстанавливают родительское сочетание крайних маркеров и скрываются в двухточечном анализе A-C.
Если события в интервалах независимы, ожидаемая доля двойных кроссоверов равна произведению рекомбинационных частот интервалов. Наблюдаемое число часто отличается: один обмен может снижать вероятность близкого второго обмена. Это явление называют интерференцией.
ожидаемая доля DCO = r(A-B) × r(B-C)
коэффициент совпадения = наблюдаемые DCO / ожидаемые DCO; интерференция = 1 - коэффициент совпадения
Разобранная задача. Интерференция по данным карты
Условие. В выборке 1000 потомков расстояния A-B и B-C равны 18 и 12 сМ, а наблюдается 20 двойных кроссоверов. Оцените ожидаемое число DCO, коэффициент совпадения и интерференцию.
- Ожидаемая доля при независимости: 0,18 × 0,12 = 0,0216.
- Ожидаемое число: 0,0216 × 1000 = 21,6.
- Коэффициент совпадения: 20/21,6 = 0,926.
- Интерференция: 1 - 0,926 = 0,074, или около 7,4%.
Ответ. Ожидалось 21,6 DCO; коэффициент совпадения около 0,93; интерференция около 0,07.
Для основной экзаменационной задачи достаточно найти порядок и интервалы. Расчёт интерференции - расширение: он помогает понять, почему генетические расстояния нельзя трактовать как простую физическую линейку и почему обмены в соседних участках не всегда независимы.
Ловушка ЕГЭ. Двойной кроссовер учитывают в каждом соседнем интервале, но число двойных потомков не удваивают при подсчёте общего размера выборки.
13. Сложные задачи по наследованию, сцепленному с полом · 90+
Перед расчётом выписывают, какую половую хромосому каждый родитель передаёт сыну и дочери. Для системы XX/XY дочь получает X от обоих родителей, сын - X от матери и Y от отца. Это простое правило устраняет большинство ошибок в задачах.
Разобранная задача. Больной отец и женщина-носительница
Условие. Рецессивный X-сцепленный признак. Женщина XAXa, мужчина XaY. Найдите четыре класса детей.
- Гаметы женщины XA и Xa; мужчины Xa и Y.
- Дочери: XAXa - здоровая носительница; XaXa - больная.
- Сыновья: XAY - здоровый; XaY - больной.
- При равной вероятности гамет каждый класс имеет долю 1/4.
Ответ. По 1/4: здоровая дочь-носительница, больная дочь, здоровый сын, больной сын.
Для X-сцепленного доминантного признака гетерозиготная мать XAXa и здоровый отец XaY дают половину детей с признаком независимо от пола. Больной отец XAY и здоровая мать XaXa передают признак всем дочерям и ни одному сыну. Эти две схемы нельзя объединять в одно правило «доминантный признак идёт по вертикали».
Признак, ограниченный полом, кодируется аутосомным геном, но проявляется только в определённой гормональной или анатомической среде. Такой аллель передают и мужчины, и женщины. Поэтому фенотипически здоровая женщина может передать аутосомный ограниченный мужским полом аллель сыну.
| Признак | Передача отец-сын | Кто может нести аллель | Диагностический признак |
|---|---|---|---|
| X-специфический | нет | оба пола | отец передаёт X всем дочерям |
| Y-специфический | всем сыновьям | только носители Y | строгая мужская линия |
| Псевдоаутосомный | возможна | оба пола | локус есть на X и Y |
| Аутосомный, ограниченный полом | возможна, но не обязательна | оба пола | передача через непроявляющий пол |
Разобранная задача. Несколько моделей после передачи отец-сын
Условие. Молекулярный анализ доказал передачу одного и того же аллеля от отца сыну. Какие локализации этого гена пока нельзя исключить? Само совпадение фенотипов отца и сына ещё не доказывает такую передачу.
- X-специфическую локализацию исключаем: отец передал сыну Y.
- Y-специфическая локализация возможна, если признак идёт всем сыновьям.
- Псевдоаутосомная возможна из-за наличия локуса на Y и обмена X-Y.
- Аутосомная модель также возможна; проявление может быть обычным или ограниченным полом.
Ответ. Y-сцепленная, псевдоаутосомная и аутосомная модели остаются возможными.
Ловушка ЕГЭ. Один переход отец-сын не доказывает Y-сцепление. Для него нужна последовательная передача всем сыновьям и отсутствие признака у дочерей при полной пенетрантности.
14. Как спроектировать картирующее скрещивание и проверить вывод · 90+
Для картирования выбирают маркеры с однозначно различимыми фенотипами или молекулярными вариантами, получают дигетерозиготу с известной или определяемой фазой и проводят тесткросс с гомозиготой по рецессивным маркерам. Потомство учитывают полностью, а не только необычные классы.
- Подтвердить генотипы родительских линий и отсутствие различий жизнеспособности.
- Получить F1 и установить, какие аллели пришли вместе от каждого родителя.
- Провести анализирующее скрещивание и собрать большую выборку.
- Выделить взаимные родительские и рекомбинантные классы.
- Рассчитать интервалы и повторить скрещивание в независимой серии.
- При асимметрии проверить пол, температуру, стадии гибели и точность маркеров.
Если сравнивают частоту кроссинговера при двух температурах, генотип, пол, возраст родителей, схема скрещивания и способ учёта должны быть одинаковыми. Независимая переменная - температура; зависимая - доля рекомбинантных потомков. Для каждой температуры нужны независимые родители, а не повторное измерение одной кладки.
Разобранная задача. Контроль жизнеспособности классов
Условие. Один класс потомков тесткросса может иметь пониженную выживаемость. Как проверить, искажает ли это карту?
- Генотипировать ранние эмбрионы, семена или зиготы до предполагаемой гибели.
- Сравнить частоты того же класса на ранней и поздней стадиях.
- Провести контрольное скрещивание, в котором соответствующий генотип образуется без необходимости рекомбинации.
- Если класс уменьшается после образования, его редкость нельзя приписывать только частоте гамет.
Ответ. Нужен учёт до и после отбора и контрольная проверка жизнеспособности генотипа.
Критерий высокого балла. Карта обоснована, когда редкость классов объясняется мейозом, а не гибелью, ошибкой фенотипирования или неодинаковыми условиями.
15. Инактивация X-хромосомы, тельце Барра и клеточная мозаичность · 90+
У млекопитающих две X-хромосомы у особей XX могли бы давать двойную дозу большинства X-сцепленных продуктов по сравнению с XY. В раннем эмбриогенезе одна X в каждой соматической клетке в значительной степени инактивируется. Конденсированную неактивную X можно видеть как тельце Барра. Выбор материнской или отцовской X в разных клетках обычно случаен, а затем сохраняется в их митотических потомках.
Женщина, гетерозиготная по X-сцепленному гену, поэтому является мозаикой клеточных клонов: в одних активна X с одним аллелем, в других — с альтернативным. Соотношение клонов не всегда ровно 1 : 1; случайность раннего развития или преимущество клеток одного типа создают смещённую инактивацию и могут влиять на выраженность признака у носительницы.
Разобранная задача. Мозаичная окраска шерсти
Условие. У гетерозиготной самки кошки два аллеля X-сцепленного гена задают разные варианты пигмента. Почему возникают участки разного цвета, а не равномерно смешанный оттенок?
- В ранней клетке случайно инактивируется одна из двух X-хромосом.
- Дочерние клетки сохраняют тот же выбор активной X.
- Клон клеток кожи экспрессирует преимущественно один аллель и формирует участок соответствующего цвета.
- Соседний клон с активной другой X создаёт участок другого цвета.
Ответ. Пятна отражают клональную мозаику после случайной инактивации разных X-хромосом.
| Кариотип | Ожидаемое число телец Барра | Логика |
|---|---|---|
| 46,XX | 1 | одна X остаётся активной, одна инактивирована |
| 46,XY | 0 | единственная X активна |
| 47,XXX | 2 | из трёх X обычно активна одна |
| 47,XXY | 1 | из двух X обычно активна одна |
| 45,X | 0 | нет лишней X для инактивации |
Правило числа телец Барра часто формулируют как число X минус одна. Оно применимо к типичной соматической клетке и не означает полного молчания всей неактивной X: часть генов, особенно в псевдоаутосомных областях, избегает инактивации. Поэтому анеуплоидии X могут иметь фенотипические последствия несмотря на компенсацию дозы.
Ловушка ЕГЭ. Инактивация X не меняет генотип клетки и не удаляет хромосому. Она меняет активность генов и создаёт мозаику экспрессии в соматических тканях.
16. Сцепленные гены в обычном скрещивании: от гамет к вероятности потомка · 90+
Анализирующее скрещивание удобно для обнаружения гамет, но в обычной задаче второй родитель тоже образует несколько типов гамет. Тогда частоты гамет каждого родителя выписывают отдельно, а вероятность конкретного генотипа получают суммой всех взаимно исключающих способов его образования. Решётка Пеннета остаётся применимой, но клетки имеют неравные веса.
Разобранная задача. Две дигетерозиготы с одинаковой фазой
Условие. Скрещены AB/ab × AB/ab. У обоих родителей r = 20%. Найдите вероятность потомка aabb.
- В фазе сочетания родительские гаметы AB и ab имеют по (1 - 0,20)/2 = 0,40.
- Рекомбинантные Ab и aB имеют по 0,10.
- Генотип aabb образуется только при объединении ab от первого и ab от второго родителя.
- P(aabb) = 0,40 × 0,40 = 0,16.
Ответ. 16%. При независимом наследовании ожидалось бы 1/16 = 6,25%, поэтому сцепление заметно повышает этот класс.
Разобранная задача. Одинаковая запись AaBb, разные фазы
Условие. Первый родитель AB/ab, второй Ab/aB; у обоих r = 20%. Найдите вероятность aabb.
- У первого родителя ab — родительская гамета с частотой 0,40.
- У второго родителя ab — рекомбинантная гамета с частотой 0,10.
- Для aabb нужны именно две гаметы ab.
- P(aabb) = 0,40 × 0,10 = 0,04.
Ответ. 4%. Для сравнения: при AB/ab × AB/ab и том же r = 20% вероятность aabb была бы 0,40 × 0,40 = 16%. В рассматриваемом скрещивании замена фазы второго родителя уменьшила её в четыре раза.
Для фенотипа aabb путь единственный, но для класса A_B_ существует несколько сочетаний гамет. Его иногда проще найти через дополнение: 1 минус вероятности aaB_, A_bb и aabb. Перед таким вычислением убеждаются, что фенотипические классы взаимно исключают друг друга и вместе охватывают всё потомство.
| Фаза | Родительские гаметы | Частота каждой при r | Рекомбинантные гаметы |
|---|---|---|---|
| AB/ab | AB, ab | (1-r)/2 | Ab, aB по r/2 |
| Ab/aB | Ab, aB | (1-r)/2 | AB, ab по r/2 |
Ловушка ЕГЭ. Запись AaBb недостаточна для расчёта сцепленного наследования. До процентов обязательно восстановите фазу у каждого родителя отдельно.
17. Как мейоз объясняет законы наследования и исключения из них · 70+
Закон чистоты гамет и расщепление аллелей связаны с расхождением гомологичных хромосом в анафазе I мейоза. Единообразие F₁ при скрещивании двух гомозиготных линий объясняется тем, что каждая линия образует один тип гамет, а потомки получают одинаковое сочетание аллелей. Независимое комбинирование возникает потому, что каждая пара гомологов ориентируется в метафазе I независимо от других пар. Однако два локуса одной хромосомы физически движутся вместе и нарушают простую модель независимости, если кроссинговер не разъединяет их достаточно часто.
Хромосомная теория не отменяет законы Менделя, а задаёт их цитологические условия. Для одного локуса расщепление аллелей сохраняется. Для двух локусов нужно сначала выяснить, находятся ли они в разных группах сцепления, а если в одной — какова фаза аллелей и частота рекомбинации.
| Генетическое наблюдение | Событие в мейозе | Ожидаемый результат |
|---|---|---|
| расхождение аллелей одного гена | разделение гомологов | два типа гамет у гетерозиготы |
| независимость двух генов | независимая ориентация двух пар | четыре типа гамет по 25% |
| неполное сцепление | обмен между локусами | родительские гаметы чаще рекомбинантных |
| полное наблюдаемое сцепление | обмен не выявлен | только два родительских типа |
Разобранная задача. Сколько групп сцепления у организма
Условие. Диплоидный набор организма равен 2n = 18. Сколько групп сцепления ожидается в обычном гаплоидном геноме и почему?
- В соматической клетке 18 хромосом образуют 9 гомологичных пар.
- Гаплоидный набор n = 9 содержит по одной хромосоме каждого типа.
- Все локусы одной хромосомы относятся к одной группе сцепления.
Ответ. Ожидается 9 групп сцепления — по числу хромосом гаплоидного набора.
Уточнение «обычно» важно: перестройки, добавочные хромосомы и особые половые хромосомы могут усложнять картину. В стандартной экзаменационной модели число групп сцепления приравнивают к n.
Ловушка ЕГЭ. Число групп сцепления сравнивают с n, а не с 2n и не с числом исследованных признаков.
18. От события кроссинговера к доле рекомбинантных гамет · 80+
Один кроссинговер между двумя локусами в одном биваленте вовлекает две из четырёх хроматид. Поэтому такой бивалент даёт две рекомбинантные и две родительские хроматиды. Если обмен произошёл в 20% мейозов, это не означает 20% рекомбинантных гамет: в простейшей модели рекомбинантными окажутся около половины продуктов этих мейозов, то есть 10% всех гамет.
Разобранная задача. Мейозы и гаметы — не одна и та же частота
Условие. Между локусами A и B одиночный обмен произошёл в 36% мейозов, в остальных обмена не было. Другими обменами пренебречь. Какова ожидаемая доля рекомбинантных гамет?
- В каждом мейозе с одним обменом рекомбинантны 2 из 4 хроматид.
- Доля продуктов обменных мейозов, несущих рекомбинацию, равна 1/2.
- 0,36 × 1/2 = 0,18.
Ответ. Ожидается 18% рекомбинантных гамет.
Обратный пересчёт от рекомбинации к доле мейозов допустим только в упрощённой модели одиночного обмена. При нескольких обменах две рекомбинации могут восстановить родительское сочетание крайних локусов. Поэтому наблюдаемая r — итог по гаметам, а не прямой счёт всех физических обменов.
Ожидаемая рекомбинационная частота в стандартной модели ограничена 50%: два взаимных родительских и два взаимных рекомбинантных типа становятся одинаково частыми. Значение r = 50% не различает гены в разных хромосомах и очень далёкие локусы одной хромосомы. Для установления принадлежности к одной хромосоме используют промежуточные маркеры и трёхточечные карты.
| Наблюдаемая r | Осторожный вывод | Чего утверждать нельзя |
|---|---|---|
| 0% | рекомбинанты в выборке не найдены | кроссинговер абсолютно невозможен |
| 0–50% | неполное сцепление в данных | физическое расстояние в парах нуклеотидов |
| около 50% | по потомству гены ведут себя независимо | они обязательно в разных хромосомах |
Ловушка ЕГЭ. Процент клеток с хиазмой и процент рекомбинантных гамет — разные величины. Всегда уточняйте, что дано в условии.
19. Трёхточечная задача как таблица восьми гамет: второй полный разбор · 90+
Надёжнее не запоминать названия восьми классов, а расположить гены в найденном порядке и для каждого взаимного класса отметить, в каком интервале произошёл обмен. После определения среднего локуса запись всех классов приводят к одному порядку букв — иначе легко ошибочно отнести одиночный кроссовер к соседнему интервалу.
Разобранная задача. Карта с фазой отталкивания
Условие. В тесткроссе получено: AbC — 338, aBc — 342, ABC — 62, abc — 58, Abc — 91, aBC — 89, ABc — 10, abC — 10. Определите порядок генов, интервалы и фазу исходной тригетерозиготы.
- Всего 1000 потомков. Родительские классы — AbC и aBc; двойные — ABc и abC.
- Сравниваем AbC с abC: различается аллель A. Аналогично aBc и ABc различаются по A. Следовательно, A — средний локус, порядок B-A-C (или C-A-B).
- Для интервала B-A одиночные классы ABC и abc; вместе с двойными: 62 + 58 + 10 + 10 = 140, то есть 14 сМ.
- Для интервала A-C одиночные классы Abc и aBC; вместе с двойными: 91 + 89 + 10 + 10 = 200, то есть 20 сМ.
- В исходном алфавитном порядке фаза AbC/aBc. В найденном порядке локусов B-A-C те же хромосомы записываются bAC/Bac; набор аллелей не меняется.
Ответ. Порядок B-A-C; B-A = 14 сМ, A-C = 20 сМ; фаза bAC/Bac в порядке карты (AbC/aBc в исходном порядке букв).
Проверка взаимности: каждый класс должен иметь партнёра, у которого все три буквы заменены на альтернативные. Например, AbC взаимно aBc, а ABC взаимно abc. Близость чисел внутри пары поддерживает модель одинаковой жизнеспособности и корректного учёта, но небольшие различия естественны из-за случайной выборки.
В этой задаче крайние локусы — B и C. Их наблюдаемая частота рекомбинации равна (62 + 58 + 91 + 89)/1000 = 30%, а сумма соседних интервалов — 14 + 20 = 34 сМ. Двойные кроссоверы (20 из 1000) учитываются в обоих интервалах, но сохраняют родительское сочетание крайних маркеров: 34 − 2 × 2 = 30%.
- Сложите все восемь классов и проверьте общий объём выборки.
- Найдите два самых больших взаимных класса (родительскую пару) и два самых малых взаимных класса (двойные кроссоверы).
- Сравните родительский и двойной гаплотипы, чтобы найти средний ген.
- Перепишите все классы в едином порядке локусов.
- Для каждого интервала сложите его два SCO-класса и оба DCO-класса.
- Проверьте расчёт долей рекомбинантов и взаимность классов. Для использования прямого пересчёта процентов в сМ интервалы должны быть достаточно короткими; генетическое расстояние в принципе может превышать 50 сМ, хотя ожидаемая доля рекомбинантов не превышает 50%.
Критерий оформления. В полном решении обязательно покажите, какие именно четыре класса вошли в числитель каждого интервала. Один итог без классификации не подтверждает карту.
20. Псевдоаутосомные области X и Y: почему возможна передача отец — сын · 80+
X- и Y-хромосомы различаются, но на их концах находятся псевдоаутосомные области PAR с гомологичными локусами. В профазе I мужского мейоза эти участки конъюгируют и могут обмениваться. Благодаря PAR X и Y правильно распознают друг друга как партнёров и расходятся по разным клеткам.
Аллель псевдоаутосомного гена есть и на X, и на Y, поэтому мужчина имеет две копии такого локуса, а не гемизиготен, как по X-специфическому гену. Аллель с отцовской Y может перейти сыну непосредственно; после кроссинговера между X и Y аллель, исходно находившийся на X, тоже способен оказаться на Y-гамете.
Разобранная задача. Отец передал аллель сыну, но ген не Y-специфический
Условие. У отца аллель M находится в псевдоаутосомном локусе Y, а на X расположен m. Мать имеет m/m. Обмена в PAR не было. Какой аллель получит сын и может ли M получить дочь?
- Сын получает Y от отца, поэтому вместе с ней получает M.
- Дочь получает от отца X, несущую m, поэтому в данном мейозе M ей не передаётся.
- Однако ген не является строго Y-специфическим: у женщин тоже есть две копии локуса на X.
Ответ. Сын получит M; дочь в указанном мейозе получит m. Локус остаётся псевдоаутосомным, а не Y-специфическим.
Родословная псевдоаутосомного признака может напоминать аутосомную: встречаются оба пола и возможна передача отец — сын. Отличие устанавливают по локализации маркера, совместной передаче с половыми хромосомами и рекомбинации в PAR, а не по одному поколению семьи.
| Область | Копии у мужчины XY | Обмен X-Y | Передача отец — сын |
|---|---|---|---|
| X-специфическая | одна на X | нет | нет |
| Y-специфическая | одна на Y | нет | да, всем сыновьям при полной передаче |
| PAR | по копии на X и Y | возможен | возможна |
Ловушка ЕГЭ. Передача отец — сын исключает только X-специфическое наследование. Она совместима с Y-, PAR- и аутосомной локализацией.
21. Комбинированные вероятности: сцепленный блок, пол и отдельный локус · 90+
Сложную задачу разбивают на независимые блоки. Внутри одной группы сцепления частоты гамет вычисляют с учётом фазы и r. Половые хромосомы записывают отдельно. Для аутосомного локуса в другой хромосоме применяют обычное расщепление. Вероятности перемножают только тогда, когда события относятся к независимо распределяющимся блокам.
Разобранная задача. Три условия в одном потомке
Условие. Самка имеет сцепленный блок AB/ab с r = 20% и генотип Dd в другой аутосоме. Её скрещивают с aabbdd. Пол потомка равновероятен. Найдите вероятность самца, получившего от самки гамету AbD.
- В фазе AB/ab гамета Ab рекомбинантна. Каждый рекомбинантный тип имеет частоту r/2 = 0,20/2 = 0,10.
- По независимому локусу Dd вероятность аллеля D равна 1/2.
- Вероятность гаметы AbD равна 0,10 × 0,50 = 0,05.
- Вероятность мужского пола равна 1/2, поэтому совместная вероятность 0,05 × 0,50 = 0,025.
Ответ. 2,5% всех потомков.
Разобранная задача. Условная вероятность среди сыновей
Условие. В той же схеме найдите вероятность получить гамету AbD среди сыновей, если пол не связан с изученными аутосомами.
- Условие «среди сыновей» означает, что мужской пол уже задан и не входит дополнительным множителем.
- Частота Ab равна 0,10, частота D — 0,50.
- 0,10 × 0,50 = 0,05.
Ответ. 5% среди сыновей; это вдвое больше доли того же класса среди всех детей.
Если два признака находятся в одной X-хромосоме, независимое перемножение уже недопустимо: нужно знать фазу X-гаплотипов и частоту рекомбинации в женском мейозе. У мужчины XY рекомбинации между двумя X-специфическими локусами нет, потому что имеется только одна X-хромосома.
Алгоритм. Подпишите каждый множитель словами. Это сразу показывает, не учли ли вы пол дважды и не объявили ли сцепленные события независимыми.
22. Финальная проверка готовности · 90+
- По расположению аллелей записываю фазу AB/ab или Ab/aB и правильно называю родительские гаметы.
- В тесткроссе нахожу взаимные классы, складываю оба рекомбинантных класса и делю на всё потомство.
- В трёхточечной задаче нахожу родительские и двойные классы, определяю средний ген и включаю DCO в оба интервала.
- Различаю XX/XY, ZZ/ZW, XX/X0 и гаплодиплоидию; называю гетерогаметный пол.
- Для X-сцепленного признака проверяю отсутствие передачи отец-сын; для Y-сцепленного - передачу всем сыновьям.
- Помню, что псевдоаутосомный ген есть и на X, и на Y и может переходить от отца сыну.
Главный вывод. Генетическая карта строится не по буквам в записи AaBb, а по частотам взаимных классов. Для половых хромосом решающим является точный участок локализации: X-специфический, Y-специфический или PAR.